Organisme hidup mewarisi kapasitas sekaligus kondisi yang memungkinkan kapasitas tersebut berkembang. Pengangkut yang berubah dapat menyediakan makanan baru; pasangan baru dapat mengubah lingkungan yang diwarisi keturunan. Perubahan seperti itu menghasilkan garis keturunan dengan daya yang berbeda dari para leluhurnya selama beberapa generasi. Sejarahnya juga mencakup makhluk yang dipelihara, dicederai, dan hilang di sepanjang jalan. Merekonstruksi sejarah itu berarti menjelaskan bagaimana kapasitas muncul dan mengidentifikasi makna pelaksanaannya bagi kehidupan yang memilikinya.
Keturunan dan percabangan
Reproduksi mewariskan sumber daya material dan perkembangan melalui proses yang sudah hidup. Pemisahan populasi, variasi, dan pertukaran terbatas dapat menghasilkan garis keturunan yang berbeda. Pohon bercabang mencatat keturunan, bukan peningkatan kesempurnaan: manusia dan simpanse yang hidup masing-masing memiliki sejarah lanjutan yang berasal dari leluhur bersama.
Fosil, persebaran geografis, anatomi, dan pewarisan molekuler membatasi rekonstruksi melalui jalur bukti yang berbeda. Perubahan berlapis pada berbagai wilayah genom menguji lebih dari kemiripan yang tampak. Rekombinasi, variasi leluhur, aliran gen, dan transfer horizontal menjelaskan mengapa sejarah gen tidak harus bertepatan dengan pohon spesies.
Stratigrafi dan penanggalan fisik membatasi kapan leluhur yang diusulkan mungkin hidup; materi yang ditanggali dan keterkaitannya penting. Waktu jauh menyediakan generasi; jalurnya merupakan rekonstruksi yang terpisah. Demikian pula, leluhur bersama terakhir organisme yang masih ada tidak harus merupakan organisasi pertama yang mampu berevolusi.
Variasi, seleksi, dan lingkungan yang dibentuk
Mutasi memiliki bias molekuler, tetapi biasanya tetap acak terhadap kebutuhan masa depan. Rekombinasi menyebarkan kembali variasi; duplikasi memungkinkan divergensi; transfer horizontal memasok materi dari garis keturunan lain; migrasi mengubah komposisi populasi. Perkembangan menentukan bentuk apa yang dapat dihasilkan oleh perubahan-perubahan ini. Plastisitas memungkinkan tanggapan yang bergantung pada kondisi tanpa otomatis membuat setiap tanggapan yang diperoleh dapat diwariskan.
Seleksi berkenaan dengan perbedaan yang diwariskan dalam sumbangan terhadap reproduksi, bukan pemeringkatan yang dapat dipertukarkan berdasarkan kekuatan, umur panjang, atau kerumitan. Untuk populasi haploid besar dengan frekuensi varian p, hasil relatif 1+s, dan hasil alternatif 1, frekuensi berikutnya adalah hasil tertimbang varian dibagi hasil rata-rata populasi:
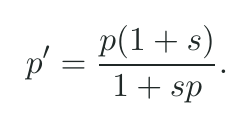
Dengan p=s=0.1, frekuensi berikut yang diharapkan sekitar 0.1089, dengan asumsi kondisi konstan dan tanpa mutasi, migrasi, atau derau pengambilan sampel.
Reproduksi terbatas menambahkan hanyutan akibat pengambilan sampel. Dalam sampel haploid ideal yang terdiri atas N keturunan independen,
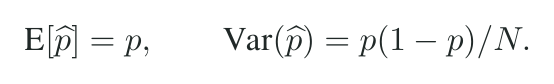
Pada p=1/2, simpangan bakunya lima poin persentase untuk N=100 dan setengah poin untuk N=10,000. Varian yang menguntungkan tidak harus menyebar pada setiap kesempatan.
Organisme juga mengubah kondisi yang diwarisi melalui kegiatan menggali, tumbuhan, kimia mikroba, dan aktivitas lain. Simbiosis menyediakan kapasitas dan ketergantungan baru. Laland dan rekan-rekannya memberi perkembangan, plastisitas, dan lingkungan yang dibentuk peran kausal lebih besar; Futuyma menunjukkan bahwa genetika populasi sudah mencakup banyak dampaknya. Penjelasan yang lebih lengkap menghubungkan umpan balik dengan variasi, pewarisan, dan konsekuensi reproduktif. Organisme aktif mengubah kondisi seleksi, dan penalaran populasi menelusuri akibatnya. Prediksi tambahan dan keberhasilannya dalam kasus-kasus tertentu menentukan apakah perluasan yang diusulkan menambahkan daya jelas.
Organisasi terdahulu membatasi dan memungkinkan perubahan kemudian. Perubahan yang berguna dapat mengganggu fungsi lain; struktur yang dipertahankan dapat digunakan untuk peran baru. Kontingensi dan konvergensi mengungkapkan sisi berbeda dari batasan tersebut. Fungsi baru dan relasi ekologis merupakan pencapaian nyata suatu mekanisme yang tidak memiliki kemampuan melihat ke depan.
Kebaruan yang dapat dipulihkan secara eksperimental
Dalam eksperimen evolusi bakteri jangka panjang, dua belas populasi menerima glukosa dan sitrat dalam jumlah terbatas pada kondisi beroksigen. Kemampuan menggunakan sitrat muncul dalam satu populasi paling lambat pada generasi ke-31.500, awalnya lemah lalu semakin disempurnakan. Menghidupkan kembali leluhur yang dibekukan menunjukkan bahwa latar belakang yang muncul kemudian lebih mudah menghasilkan keturunan pengguna sitrat. Analisis genom mengidentifikasi duplikasi yang menempatkan pengangkut yang sudah ada di bawah promotor aktif secara aerobik; perubahan selanjutnya meningkatkan penggunaannya. Berbagai latar belakang mendukung adanya jalur yang dapat ditempuh, sehingga kontingensi tidak menyiratkan adanya satu urutan yang mutlak diperlukan.
Keefe dan Szostak menyaring sekitar 6×10^(12) protein dengan delapan puluh posisi asam amino acak, lalu mengisolasi empat pengikat ATP yang tidak berkerabat. Translasi, penayangan, seleksi, amplifikasi, dan variasi yang kemudian dimasukkan membentuk lingkungan eksperimen. Hasilnya menunjukkan bahwa pengikatan ATP dapat dicapai dengan mengambil sampel sekuens acak.
Ekspresi, pengerahan, dan retensi
Ekspresi menyediakan suatu produk; interaksi memberinya konsekuensi; seleksi dapat mempertahankan sebagian konsekuensi. Carvunis dan rekan-rekannya mengidentifikasi sekitar 1.900 kandidat protogen ragi, di antara sekuens yang belum dianotasi dan gen yang telah dikenal. Banyak yang tidak menunjukkan bukti seleksi pemurnian yang dapat dideteksi, sementara sebagian menunjukkan retensi dalam menghadapi perubahan asam amino. Translasi bervariasi menurut kondisi, sehingga ekspresi saja tidak membuktikan adanya fungsi.
Organisme digital Lenski dan rekan-rekannya memperoleh operasi logis yang kompleks melalui operasi yang lebih sederhana dan diberi imbalan. Riwayatnya yang dapat diperiksa menunjukkan bagaimana pemerolehan kumulatif bekerja di dalam aturan komputasi yang telah ditentukan.
Babina dan rekan-rekannya menemukan tiga protein hidrofobik yang masing-masing terdiri atas paling banyak lima puluh asam amino dan memulihkan pertumbuhan pada bakteri yang kekurangan serB. Peningkatan ekspresi hisB mengerahkan aktivitas fosfatase alternatif yang sudah ada; pengikatan Hdp1 pada RNA pengatur mendukung salah satu mekanisme. Produk baru yang pendek dapat menguntungkan sel dengan mengubah ketersediaan kapasitas lama.
Dalam eksperimen bakteri jangka panjang, uz-Zaman dan rekan-rekannya menemukan sekuens sisipan dan penataan ulang yang mengerahkan promotor yang sudah ada ke wilayah yang sebelumnya senyap. Dalam kasus-kasus yang diperiksa, hal ini lebih menonjol daripada pembentukan promotor baru. Model Iyengar dan rekan-rekannya serta perbandingan ragi/lalat buah menemukan kerangka baca antisense yang menguntungkan bagi pemerolehan dan retensi kerangka baca terbuka. Pengodean yang sudah terbentuk dan tumpang tindih membatasi ketersediaan kandidat; dampak kebugaran protein yang dihasilkan memerlukan bukti terpisah.
Frumkin dan rekan-rekannya menemukan ribuan sekuens antifag dari pustaka ekspresi yang sebagian diacak. Produk yang dikarakterisasi mengerahkan produksi kapsul yang diinduksi stres atau mengurangi reseptor fag OmpC; sebagian bekerja melalui RNA. Pustaka dengan bias kodon dan inang hidup menyediakan kondisi agar sekuens ini dapat diekspresikan dan diseleksi untuk perlindungan.
Survei populasi alami oleh uz-Zaman dan Ochman memberikan bukti penyeimbang: banyak protein yang belum dianotasi menunjukkan sedikit bukti bahwa mereka berkembang menuju fungsi, dan hanya kemunculan de novo satu protogen yang direkonstruksi secara ketat dalam sejarah bakteri yang disampel. Kerabat yang tidak ditemukan dan asal-usul yang sulit dipulihkan memberi pertimbangan bagi kedua sisi, sehingga laju kelahiran gen de novo tetap menjadi pertanyaan pengukuran terbuka. Ekspresi yang kerap terjadi dan pengerahan fungsional kemudian tetap merupakan laju yang berbeda.
Masalah asal-usul yang saling terkait
Asal-usul kehidupan memerlukan produksi, keberlangsungan, pemekatan, penggunaan energi bebas, katalisis, pewarisan, serta keterkaitan produk dengan sesuatu yang mewarisi dampaknya. Operasi-operasi ini saling membatasi, bukan membentuk daftar periksa sederhana. Ikatan cetakan yang stabil dapat mencegah pemisahan; batas pelindung dapat menghalangi substrat; sintesis dapat menghasilkan penghambat.
Pendahulu tidak harus mereproduksi pembagian kerja sel modern. RNA dapat menggabungkan peran pewarisan dan katalisis; pori atau permukaan dapat menyediakan pembatasan; siklus lingkungan dapat bergantian kondisi sebelum pengaturan internal berkembang. Namun, pemisahan, pengisian ulang, dan siklus yang diberlakukan dalam eksperimen sendiri merupakan sumbangan yang padanannya harus dijelaskan dalam lingkungan yang diusulkan.
Jika suatu katalis mendorong pertumbuhan kompartemen dan tetap bersama keturunannya, variasi dapat mengubah kelanjutan reproduksinya sendiri. Jika katalis itu berdifusi bebas dan menguntungkan semua kompartemen, relasi pewarisannya berubah. Eksperimen asal-usul lebih menjelaskan ketika kimia prekursor, penyalinan, penggunaan energi, dan asosiasi spasial terhubung dalam kondisi yang sesuai atau berurutan.
Prekursor dan penggandengan kimia
Powner, Gerland, dan Sutherland menunjukkan sintesis ribonukleotida pirimidina teraktivasi melalui zat antara, bukan perakitan langsung basa, gula, dan fosfat yang telah terbentuk sempurna. Fosfat mengarahkan reaksi-reaksi awal; hasil zat antara pertama melebihi delapan puluh persen, sementara fosforilasi dan perlakuan ultraviolet berikutnya menyeleksi turunan sitidina dan uridina. Hasil awal itu bukan hasil keseluruhan RNA. Kondisi bertahap merupakan bagian dari hal yang dijelaskan eksperimen tersebut.
Patel dan rekan-rekannya menghubungkan prekursor RNA, asam amino, dan lipid melalui kimia sianosulfidik dengan menggunakan sinar ultraviolet, daya pereduksi, dan jalur yang dibantu tembaga. Zat antara terkait RNA terhubung dengan jalur gliserol dan prekursor asam amino; satu interkonversi menghasilkan lima puluh sembilan persen. Skenario aliran dan kumpulan mereka menyusun reaksi-reaksi yang didukung itu menjadi urutan geologis yang diusulkan.
Jalur pembentukan membran menghubungkan kimia ini dengan kompartemen. Cho dan rekan-rekannya menunjukkan bahwa sisteina bereaksi spontan dengan dua tioester rantai pendek C8 di dalam air untuk membentuk vesikel lipid diasil. Silika mengatalisis reaksi tersebut, dan vesikel tetap serasi dengan ribozim fungsional.
Abil dan rekan-rekannya lalu membangun jembatan berbeda: liposom yang mengandung sistem transkripsi--translasi--replikasi rekombinan menopang cetakan DNA linear yang mengode Φ29 polimerase DNA dan protein terminal, bersama protein murni pengikat DNA untai tunggal dan ganda serta nukleotida yang dipasok. Rangkaian berkala atau semikontinu menghasilkan mutasi adaptif dalam sepuluh putaran. Hasilnya menunjukkan evolusi Darwinian yang terkompartemen dalam sistem biokimia yang direkayasa secara intensif, termasuk perangkat molekuler yang dimurnikan dan redistribusi melalui pembekuan--pencairan.
Singh dan rekan-rekannya menunjukkan aminoasilasi RNA yang diperantarai tioester pada pH mendekati netral. Untai tunggal memaparkan tempat perlekatan internal; pengaturan untai ganda melindunginya dan mendorong perlekatan terminal. Kimia kondisi beku yang terpisah menghasilkan tioester terkait dengan hasil empat puluh delapan persen, sementara pengujian perlekatan di tahap berikutnya memakai konsentrasi pereaksi yang jauh lebih tinggi. Pengubahan kimia aktivasi memungkinkan produk peptidil, sehingga aminoasilasi dan pembentukan peptida tetap merupakan tahap yang berbeda.
Hasil-hasil ini mengidentifikasi selektivitas dan penggandengan yang dapat dicapai, sementara pasokan, pemekatan, kesesuaian, dan pembaruan masih perlu disatukan. Reaksi aminoasilasi dan reaksi peptidil-RNA menetapkan operasi kimia yang digunakan dalam translasi. Menetapkan korespondensi yang diwariskan dan mengarahkan urutan peptida merupakan pencapaian tambahan yang berbeda.
Penyalinan berulang dan persistensi
Kesetiaan sekuens dan pewarisan yang berulang merupakan pencapaian yang berbeda dari panjang polimer. Duzdevich dan rekan-rekannya menyekuensing produk pemanjangan bersama cetakannya, sehingga ketidakcocokan dan titik henti dapat diketahui. Satu kendali ketidakcocokan yang disengaja mencatat pemanjangan pada 6.1 persen pasangan hasil baca, dengan lebih dari sembilan puluh delapan persen pengamatan ketidakcocokan berada di posisi pertama. Itu merupakan kondisi kendali, bukan laju kesalahan prebiotik yang universal.
Zhou dan rekan-rekannya menggunakan untai penyerbu pendek untuk menggantikan untai komplemen penghalang dan memulihkan pemanjangan primer yang tidak terjadi tanpa penyerbu. Sintesis pemanjangan terkuat menggunakan analog reaktif yang menghasilkan 3'-NP-DNA pada cetakan RNA. Untai dan substrat yang dipasok menetapkan mekanisme penggantian, bukan siklus penyalinan yang mandiri dan hanya berbasis RNA.
Attwater dan rekan-rekannya menggabungkan ribozim polimerase rekayasa dengan substrat trinukleotida teraktivasi. Triplet itu menopang sintesis dan membatasi penyepasangan kembali untai secara langsung. Pemisahan asam/panas, netralisasi, pembekuan, dan pengisian ulang yang diterapkan memungkinkan produk suatu siklus menjadi cetakan pada siklus berikutnya. Kelas produk yang lebih pendek dan muncul kemudian mencapai amplifikasi hingga 60.000 kali setelah pengenceran diperhitungkan; eksperimen terpisah menyalin segmen katalis sepanjang dua puluh sembilan nukleotida dan memungkinkan inisiasi tanpa primer. Hasilnya adalah amplifikasi berulang dan penyalinan mandiri sebagian, bukan pembaruan katalis lengkap beserta kimia penunjangnya.
Model genom sirkular virtual Burger dan Gerland menyebarkan sekuens yang lebih besar ke beberapa untai yang saling tumpang tindih. Konsentrasi, panjang, dan preferensi untuk penambahan bahan awal menentukan perakitan yang benar dibandingkan penyambungan yang rawan kesalahan. Untai informatif yang lebih panjang pada konsentrasi lebih rendah dan penambahan monomer yang diutamakan menentukan ranah untuk pengujian kimia.
Model sekuens eksak yang sederhana menunjukkan alasan tuntutan-tuntutan ini saling terkait:
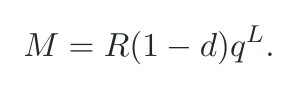
Dengan R salinan untuk setiap induk yang digantikan, panjang L, kesetiaan independen per posisi q, dan peluang bertahan hidup 1-d, M adalah jumlah keturunan eksak yang diharapkan bertahan. Untuk R=2,d=0.1,L=100, perubahan q dari 0.99 menjadi 0.999 mengubah M dari sekitar 0.659 menjadi 1.629. Sekuens nyata menoleransi beberapa perubahan, kesalahan dapat saling berkorelasi, dan fragmen yang bekerja sama dapat membagi tuntutan. Model ini mengidentifikasi ketergantungannya.
Jalur menuju evolusi Darwinian harus menggabungkan variasi fungsional yang diwariskan, perambatan diferensial, dan organisasi yang menopang keduanya. Penjelasan yang berpusat pada RNA, metabolisme, dan kompartemen menyumbangkan operasi yang berbeda pada persoalan itu. Penggabungan yang dibatasi oleh hasil eksperimen lebih baik daripada memperlakukan masing-masing sebagai pandangan tandingan tentang asal-usul yang lengkap: pewarisan memerlukan energi dan asosiasi spasial, sementara kimia yang berguna memerlukan jalur pewarisan. Bukti saat ini mendukung komponen-komponen penting tanpa memilih satu skenario geokimia yang lengkap, dan uraian teologis tidak dapat menyediakan konsentrasi, katalis, atau urutan lingkungan yang belum diketahui. Penciptaan memberi alasan untuk menerima daya yang ditemukan sebagai sebab nyata; kasus komparatif bagi Sang Pencipta berasal dari argumen yang lebih luas, bukan dari rincian yang belum tersedia itu.
Keturunan manusia dalam beberapa pengertian
Fosil Jebel Irhoud memadukan wajah, rahang, dan gigi yang selaras dengan Homo sapiens awal atau yang lebih baru, beserta ciri tengkorak yang lebih leluhur. Batu api yang dipanaskan dan ditemukan bersamanya menghasilkan penanggalan 315±34 ribu tahun melalui termoluminesensi, dengan perbandingan berbasis gigi. Karena itu, ciri-ciri dan sejarah populasi tidak harus berubah secara bersamaan.
Thomas Quarry I di Casablanca menambahkan perbandingan Afrika yang lebih dalam. Hublin dan rekan-rekannya menanggali hominin baru dari lokasi ThI-GH sekitar 773 ribu tahun dan menemukan campuran ciri primitif dengan ciri yang menyerupai Homo sapiens yang lebih baru dan kelompok arkais Eurasia. Fosil-fosil ini memperkuat keberadaan populasi leluhur Afrika sebelum Jebel Irhoud, sementara morfologinya yang mosaik mengingatkan agar kita tidak membayangkan satu batang keturunan manusia yang lurus dan sederhana.
Koalesensi genetik menelusuri salinan leluhur yang khusus untuk wilayah tertentu. Rekombinasi memungkinkan tanggal berbeda di berbagai wilayah; ukuran populasi efektif menggambarkan proses genetik yang diidealkan, bukan sensus. Gronau dan rekan-rekannya menyimpulkan ukuran efektif leluhur mendekati 9.000 berdasarkan asumsi demografis yang dikalibrasi.
Ragsdale dan rekan-rekannya mengunggulkan populasi batang Afrika yang berdiferensiasi lemah dan dihubungkan oleh aliran gen berulang. Model berbeda dari Cousins, Scally, dan Durbin menyimpulkan pemisahan dalam sekitar 1,5 juta tahun dan penyatuan kembali sekitar 300.000 tahun lalu, dengan sumbangan sekitar delapan puluh dan dua puluh persen. Keduanya mendukung adanya struktur leluhur; ruang model yang berbeda membiarkan susunannya tetap terbuka. Populasi mereka tidak dapat begitu saja disamakan dengan kelompok fosil bernama.
DNA purba kini juga menjelaskan sebagian zaman Holosen, bukan asal-usul paling dalam itu sendiri. Jakobsson dan rekan-rekannya menyekuensing dua puluh delapan individu Afrika selatan purba yang bertanggal antara 10.200 dan 150 tahun terkalibrasi sebelum kini; genom yang berusia lebih dari sekitar 1.400 tahun berada di luar variasi sampel yang hidup, sementara wilayah tersebut menunjukkan sedikit stratifikasi spasial atau temporal selama kira-kira 9.000 tahun. Penelitian itu menyimpulkan bahwa aliran gen ke luar dimulai lebih dari 8.000 tahun lalu dan aliran gen ke dalam baru terjadi setelah sekitar 1.400 tahun lalu. Data ini mengungkap keanekaragaman dan kontinuitas sepanjang Holosen yang sebelumnya tersembunyi.
Keturunan genealogis berarti hubungan orang tua dan anak, sekalipun tidak ada DNA yang dapat diidentifikasi bertahan dari seorang leluhur. Silsilah memiliki 2^g posisi pada jarak g generasi ke belakang, tetapi pengulangan orang dan jalur yang tumpang tindih menjadikan jumlah posisi itu kurang dari 2^g individu berbeda. Sumbangan autosomal yang diharapkan di sepanjang satu jalur tanpa pengulangan adalah 2^(-g), bukan materi yang dijamin tetap bertahan. Leluhur garis mitokondria dan Y menelusuri jalur yang lebih sempit dan tidak harus merupakan satu-satunya orang sezaman ataupun sepasang suami istri.
Model terstruktur Rohde, Olson, dan Chang memungkinkan adanya leluhur genealogis universal hanya beberapa ribu tahun ke belakang, dengan syarat migrasi dan keterhubungan yang memadai. Isolasi yang berlanjut meniadakan kemungkinan adanya leluhur dari luar pada masa yang lebih baru. Sepasang pendiri tunggal hanya memungkinkan paling banyak empat salinan autosomal awal di satu lokasi; sepasang orang dalam populasi yang lebih besar memungkinkan sumbangan genetik lain tetap ada. Pengangkatan dalam perjanjian menambahkan relasi yang berbeda.
Perilaku purba dan jangkauan buktinya
Paige dan Perreault mengukur kerumitan prosedural alat batu selama 3,3 juta tahun dengan perbandingan primata, manusia yang belum berpengalaman, dan pemecahan batu secara acak. Peningkatan berkelanjutan sekitar 600.000 tahun lalu dan beberapa teknologi yang mendekati dua kali garis dasar primata sekitar 300.000 tahun lalu mendukung adanya kebudayaan kumulatif menurut ukuran tersebut.
Pemakaman Panga ya Saidi, bertanggal 78.3±4.1 ribu tahun, berisi jasad seorang anak berusia sekitar dua setengah hingga tiga tahun. Sedimen lubang, jasad yang masih berartikulasi, dan bukti penguraian mendukung kesimpulan bahwa pemakaman itu disengaja, meskipun tidak mengungkap keyakinan para pelayat. Tengkorak 17 dari Sima de los Huesos, berusia sekitar 430.000 tahun, memiliki dua patah tekan perimortem yang serupa dengan lintasan berbeda. Pola itu mendukung adanya pukulan berulang yang disengaja dan mematikan, sementara motifnya tetap tidak diketahui.
Kapasitas makhluk yang hidup memberi bahan perbandingan tanpa menetapkan kapan kapasitas itu pertama kali muncul. Mobbs dan rekan-rekannya menemukan bahwa kedekatan ancaman menggeser aktivitas manusia ke arah substansia kelabu periaqueductal, terutama ketika nyeri yang diantisipasi lebih besar. Anderson dan rekan-rekannya mengamati simpanse merawat, memeriksa tanda kehidupan, menemani, membersihkan, menunjukkan agresi, dan kemudian menghindari tempat tertentu di sekitar suatu kematian. Semua ini menyingkapkan tanggapan defensif dan sosial tanpa menyamakan semua perilaku dengan satu emosi manusia.
Perencanaan, keterikatan, perilaku yang menyerupai dukacita, dan kekerasan semuanya berada dalam jangkauan bukti. Makhluk purba yang kehidupannya sedang direkonstruksi memiliki kebaikan dan kerentanannya sendiri. Pribadi manusia mana pun di antara mereka memiliki seluruh kedudukan yang diuraikan dalam Bab 13, tanpa bergantung pada teknologi atau sedikitnya sisa-sisa yang ditemukan.
Adam dalam sejarah berjasmani
Permulaan aktual yang bersifat perjanjian tidak harus berupa sepasang manusia genetis eksklusif yang hidup baru-baru ini. Dalam pewarisan biasa, penyempitan populasi sesederhana itu menghadapi bukti genetik yang kuat; sepasang manusia dalam populasi yang lebih luas membiarkan sumbangan genetik lain tetap ada. Penempatan genealogis dan historis yang lebih dalam memerlukan buktinya sendiri. Penafsiran arketipal dan korporat menjelaskan makna universal kisah itu tanpa dengan sendirinya menempatkan peristiwa pemrakarsanya.
Alasan kanonis bagi suatu permulaan aktual terletak pada dampak kausal pelanggaran dalam Roma 5 dan sejarah tertata dari kehidupan duniawi menuju kebangkitan dalam 1 Korintus 15, dibaca bersama silsilah dalam Kitab Kejadian. Menggunakan suatu kisah hanya sebagai tipe tidak akan menetapkan kesejarahannya. Penilaian ini bergantung pada otoritas apostolik yang dibela dalam Bab 21 dan 24; Bab 17 mengembangkan perbandingannya dengan penafsiran arketipal. Makna universal dan tindakan pemrakarsa dapat menjadi bagian dari sejarah yang sama tanpa menyiratkan monopoli genetik.
Status sebagai kepala adalah relasi perjanjian, bukan padanan keturunan genetis eksklusif. Kekurangan dan mortalitas yang diwariskan juga berbeda dari tindakan salah pribadi yang patut dipersalahkan pada masa kemudian. Jika ada pribadi sebelum Adam, martabat mereka tetap penuh dan keadaan mereka tidak memberikan kesalahan moral. Bukti kesalahan yang dapat dipertanggungjawabkan sebelum tanggal pembelotan pertama yang diusulkan akan menuntut revisi atas tanggal itu atau peran Adam, bukan pendefinisian ulang para pelaku salah terdahulu itu sebagai bukan pribadi.
Kehilangan sepanjang waktu jauh
Fosil mendokumentasikan serangan dan perbaikan purba melalui sisa pencernaan, lubang, dan bekas luka. Pertumbuhan selanjutnya mendukung kelangsungan hidup setelah kerusakan; patah tulang yang tidak pulih lebih ambigu. Pengenalan, pengangkutan, pelestarian, dan pengambilan sampel memengaruhi perkiraan prevalensi; catatan kumulatif pemangsaan tetap ada.
Tulang fibula Centrosaurus dari sekitar 77.0--75.5 juta tahun lalu, yang sebelumnya diidentifikasi sebagai patah tulang yang sembuh, menunjukkan pertumbuhan abnormal invasif yang sesuai dengan osteosarkoma berdasarkan pencitraan, sayatan tipis, dan perbandingan. Karena itu, spesimen tersebut mengidentifikasi patologi individual yang serius jauh sebelum manusia ada.
Green dan rekan-rekannya menghubungkan secara statistik waktu dan laju basal banjir benua dengan kepunahan, serta mengusulkan dampak vulkanik pada lingkungan. Henehan dan Witts membantah perluasan pandangan itu kepada peristiwa-peristiwa berikutnya, khususnya Kapur--Paleogen, dengan mempertimbangkan perubahan kondisi laut dan siklus karbon. Penyebabnya tetap khusus bagi tiap peristiwa, sementara kehilangan itu dicatat secara terpisah.
Nosisepsi memproses rangsangan yang merusak; rasa sakit menambahkan pengalaman yang tidak menyenangkan. Eksperimen Crook pada gurita menggabungkan penghindaran tempat yang berkaitan dengan cedera, perilaku perlindungan, aktivitas saraf, dan tanggapan terhadap anestetik lokal. Schnell dan rekan-rekannya mempertahankan bukti konvergen itu sambil mencatat tidak adanya kendali salin yang dicocokkan dengan gurita yang terluka dalam perbandingan pengondisian peredaan nyeri. Penilaian mereka pada 2026 menemukan bukti kuat untuk gurita dan sotong, bukti cukup besar untuk cumi-cumi, dan penelitian yang terlalu sedikit untuk memastikan sentiens pada nautilus. Ini adalah tingkatan bukti, bukan tingkatan pengalaman ataupun temuan bahwa hewan yang kurang diteliti tidak dapat merasa.
Keadaan yang dialami makhluk yang telah punah memerlukan inferensi anatomi dan evolusi lebih lanjut. Jika pengalaman mereka memang didukung bukti, manfaat evolusioner di tempat lain tidak menjawab kehilangan yang dialami subjek terkait. Kematian mangsa memberi makan pemangsa tanpa memulihkan mangsa; kepunahan dapat membuka relung, tetapi sekaligus mengakhiri kehidupan nyata. Skalanya penting: pada kebanyakan garis keturunan, sebagian besar keturunan mati sebelum bereproduksi, dan kepunahan massal menghapus bagian besar spesies yang hidup saat itu, sehingga kehilangan yang dibahas merupakan kaidah sejarah ini, bukan pengecualiannya.
Tujuan dalam sejarah yang mungkin berbeda
Kontingensi evolusioner mengubah makhluk dan daya mana yang menjadi nyata. Hal itu tidak menjadikan daya mereka tidak nyata ataupun membuat kebaikan mereka bergantung pada selera pengamat. Begitu suatu kehidupan terorganisasi ada, pemeliharaan, perkembangan, cedera, dan perbaikan membawa konsekuensi bagi kehidupan itu. Organisasi yang diwarisi dan lingkungannya menentukan kegiatan apa yang tersedia; apakah kegiatan itu menopang atau merusak subjeknya kemudian dapat diselidiki secara kausal. Suatu daya dapat memiliki asal-usul kontingen dan sumbangan yang dapat ditentukan.
Kasus yang diamati membuat kaidah tersebut konkret. Saad dan rekan-rekannya menemukan bahwa planaria gua mempertahankan mata kecil yang masih berfungsi, sambil menghasilkan lebih sedikit sel pendahulu yang mengarah pada mata dan meregenerasi mata lebih lambat daripada pembanding dari permukaan. Penjelasan evolusionernya masih terbuka antara seleksi dan seleksi pemurnian yang mengendur. Mata yang lebih besar dan tampak lebih leluhur tidak serta-merta berarti penyembuhan, dan mata yang ada tidak dinyatakan optimal hanya karena bertahan. Pertanyaan yang relevan berkenaan dengan apa yang dapat dimungkinkan atau diganggu oleh perubahan pada hewan-hewan ini dalam kondisi mereka. Evolusi menjelaskan bagaimana daya mereka menjadi nyata; sumbangannya terhadap aktivitas subjek yang memilikinya tetap terbuka untuk diselidiki.
Eksperimen sitrat memberikan kasus teramati yang lebih terbatas. Latar belakang yang diwariskan lebih awal mengubah inovasi mana yang dapat dicapai, sementara pengaturan pengangkutan yang akhirnya muncul membuat sumber daya baru dapat digunakan. Sumbangannya dapat dinilai meskipun pengaturan itu tidak harus berevolusi. Jika sejarah lain menghasilkan jalur metabolisme yang berbeda, kebaikan yang relevan akan menjadi milik organisme yang dihasilkan beserta ketergantungan nyatanya. Perbandingan ini tidak mengandaikan bahwa individu yang sama akan ada dengan keturunan yang berbeda, atau bahwa setiap garis keturunan yang mungkin harus muncul. Perbandingan ini menerapkan pertanyaan yang sama kepada subjek yang tercakup dalam setiap sejarah: apa yang dapat diterima dan dilakukan kehidupan ini, serta apa yang menopang atau mencederainya? Kehidupan yang lebih baik bagi makhluk lain dalam sejarah alternatif tidak dengan sendirinya memperbaiki cedera makhluk yang nyata.
Sang Pemberi yang baik dapat memaksudkan penerima hidup ini dan partisipasi mereka sendiri dalam kebaikan makhluk. Organisme berkembang melalui sumber daya warisan, mengubah habitat, menyediakan kebutuhan anaknya, dan kadang-kadang memperbaiki diri. Aktivitas mereka ikut menghasilkan apa yang mereka terima dan teruskan. Partisipasi semacam itu memberikan alasan positif bagi penciptaan melalui sejarah tanpa memerlukan inventaris spesies yang tetap atau kecenderungan evolusi menuju kompleksitas maksimum.
Perhatian Allah kemudian tertuju pada makhluk nyata, daya mereka, dan apa yang terjadi melalui mereka. Kapasitas untuk mencari makan menopang kehidupan pemangsa; pelaksanaannya dapat mencederai kehidupan mangsa secara parah. Keberhasilan ekologis ataupun kemunculan manusia kemudian tidak menjadikan mangsa rancangan antara yang penderitaannya boleh diabaikan. Keacakan terhadap kebutuhan masa depan menggambarkan variasi, bukan tujuan akhirnya. Demikian pula, tujuan bagi penerima hidup tidak memberikan dasar untuk menetapkan tujuan baik bagi setiap peristiwa yang merugikan.
Kemampuan mengalami menambahkan relasi lebih lanjut: suatu makhluk dapat mengalami kebaikan yang diterimanya. Nutrisi, gerak, dan keterikatan dapat berarti bagi keberlanjutan kehidupannya sekaligus bagi bagaimana kehidupan itu dijalani. Hubungan ini dapat dijangkau secara eksperimental. Dalam penelitian Aizawa dan rekan-rekannya terhadap enam belas peserta, kehangatan setempat dinilai sama panasnya, sementara pemanasan dan pendinginan seluruh tubuh mengubah apakah sensasinya terasa menyenangkan. Kondisi tubuh dan nilai yang dirasakan saling terhubung tanpa menjadi ukuran yang sama.
Pengejaran dan kenikmatan hewan itu sendiri atas nutrisi, gerak, atau kebersamaan memberi alasan bagi uraian tentang Sang Pemberi yang baik untuk mengharapkan sebagian keterkaitan antara perasaan dan fungsi sebelum adanya agensi moral. Hal ini memberi teisme alasan untuk mengharapkan keterkaitan antara perasaan dan fungsi; hal ini tidak menetapkan keunggulan kemungkinan secara komparatif ataupun keniscayaan pengalaman yang tidak menyenangkan. Kasus-kasus tersulit Draper tetap bertahan: penderitaan hebat setelah tanggapan perlindungan tidak lagi mungkin dapat dijelaskan secara biologis sambil tetap menjadi bukti yang menentang pemerintahan yang penuh kebajikan. Bab 26 membandingkan pola ini dengan hipotesis ketidakpeduliannya.
Seorang naturalis dapat menjelaskan mekanisme ini dan mengakui kebaikan yang sama. Klaim Kristen lebih lanjut adalah bahwa perhatian Sang Pemberi tetap ada saat mekanisme yang berguna gagal. Argumen bagi Sang Pemberi yang baik serta sejarah dan identitas Kristus memberikan dasar pembenarannya: pembaruan berjasmani yang diklaim dalam Kristus adalah pemenuhan yang diterima oleh kehidupan berjasmani yang sungguh-sungguh ada. Bab 35 memperluas penyelidikan kepada hewan yang terluka melalui pembebasan ciptaan yang dijanjikan dan pemeliharaan khusus Allah. Pengharapan itu bergantung pada Sang Pemberi janji yang dinilai secara tersendiri. Para penerus yang lebih sehat tidak akan dengan sendirinya memberikan kebaikan kepada makhluk yang menderita.
Lantas, mengapa mengizinkan jalur dan pembagian kehilangan berat ini ketika sejarah lain tampak mungkin? Partisipasi makhluk menunjukkan suatu kebaikan sejarah tanpa membuktikan bahwa setiap kerugian perlu untuk memberikannya. Keberhinggaan dan ketergantungan dapat menjadi kebaikan sebelum penyempurnaan; cedera yang tidak disembuhkan merupakan kekurangan di dalam kebaikan itu. Pembedaan mereka mencegah anggapan bahwa kehidupan yang berevolusi adalah ciptaan gagal, sekaligus mencegah pengabaian terhadap para penderitanya sebagai harga yang dapat diterima. Bab 26 dan 35 menelusuri jawaban yang diharapkan atas kehilangan nyata tersebut.
Cakupan teologis sejarah ini
Kejadian 1 menyajikan tumbuh-tumbuhan sebagai makanan dalam gambaran penciptaannya; Mazmur 104 dan Ayub mencakup pemangsa liar dalam pemeliharaan masa kini; Yesaya 11 menjanjikan perdamaian hewan dalam pemerintahan yang akan datang. Pemberian, pemerintahan, dan cakrawala yang dipulihkan termasuk dalam uraian kanonis tentang satu ciptaan.
Para pembaca awal memahami sejarah itu secara berbeda. Theophilus mengaitkan keganasan hewan dengan pelanggaran; Basil membahas pemakan daging dalam pemeliharaan ilahi; Irenaeus mengharapkan perdamaian Yesaya mencakup hewan yang diperbarui dan makanan semula. Kronologi Theophilus bertentangan dengan pemangsaan yang tercatat jauh sebelum manusia ada, sedangkan Basil tidak sedang menguraikan evolusi modern. Kontinuitasnya terletak pada penciptaan yang baik dan pembaruan berjasmani, dengan sejarah di antaranya yang kini diketahui lebih lengkap.
Roma 5 menelusuri dosa dan kematian melalui satu manusia hingga manusia; 1 Korintus menjawab kematian dalam Adam dengan kehidupan berjasmani di dalam Kristus. Kejadian 3 menghubungkan pengusiran dari kehidupan dengan kembalinya manusia menjadi debu, sementara Ibrani 2 membedakan kuasa kematian dari ketakutan yang memperbudak. Karena itu, kematian Adamik menamai kematian jasmani dalam pemerintahan Dosa yang personal dan bersifat perjanjian. Kehilangan jasmani yang sama memperoleh relasi dengan keterasingan, tuduhan, dan penghakiman; pembedaan ini berkenaan dengan kondisi historis dan cakrawala akhirnya.
Pembedaan ini mencegah pemangsaan prasejarah menjadi bukti pelanggaran manusia yang lebih awal. Bab 17 menjelaskan relasi tambahan yang menjadikan mortalitas alat untuk penyembunyian, pemaksaan, dan ketidakpercayaan; Bab 22 mengembangkan pembebasan dari pemerintahan itu. Kematian biologis, ketakutan akan kehilangan, dan penggunaan ketakutan yang patut dipersalahkan memerlukan penjelasan yang berbeda.
Kebangkitan menjadikan kematian jasmani bersifat sementara. Kematian kedua dalam Wahyu terjadi setelah kebangkitan dan penghakiman; kematian itu menamai relasi yang berbeda dari mortalitas prasejarah biasa.
Ciptaan dalam Roma 8 yang ditundukkan tanpa kehendaknya mengeluh menuju pembebasan bersama tubuh manusia yang ditebus. Penderitaannya merupakan ketertundukan pada kesia-siaan, bukan pemberontakan moral. Kesalahan manusia juga menjalar ke tanah dan kehidupan bersama, sebagaimana diuraikan Kejadian, Imamat, Hosea, dan Yesaya. Kanon tidak menguraikan jalur sebanding yang memungkinkan kejatuhan malaikat membentuk sejarah fosil.
Keturunan dan kebaruan menggambarkan pembentukan daya; manfaat dan cedera menggambarkan maknanya bagi subjek yang memilikinya. Pembebasan yang dijanjikan berkenaan dengan ciptaan nyata ini, termasuk para penderitanya, bukan hanya produktivitas populasi yang bertahan. Bab berikutnya menelusuri satu daya lain dalam sejarah itu: kemampuan makhluk untuk mengalami dunianya, belajar darinya, dan bertindak berdasarkan apa yang akhirnya diketahuinya.
Riset terkait
Bandingkan bab ini dengan dokumen sumber atau pelajari rujukan Alkitabnya.
Chapter comments