Los organismos vivos heredan tanto capacidades como las condiciones en que estas se desarrollan. Un transportador modificado puede poner a disposición un alimento nuevo; un nuevo organismo asociado puede cambiar el entorno heredado por sus descendientes. A lo largo de las generaciones, estos cambios producen linajes cuyas facultades difieren de las de sus antepasados. Su historia también incluye a las criaturas que fueron alimentadas, heridas y perdidas en el proceso. Reconstruirla implica explicar cómo surgieron las capacidades e identificar qué significó su ejercicio para la vida de los organismos que las poseían.
Descendencia y ramificación
La reproducción transmite recursos materiales y de desarrollo mediante un proceso ya viviente. La separación de poblaciones, la variación y un intercambio restringido pueden producir linajes distintos. Un árbol ramificado registra la descendencia, no un aumento de perfección: los seres humanos y los chimpancés actuales tienen cada uno historias posteriores que parten de antepasados compartidos.
Los fósiles, la distribución geográfica, la anatomía y la herencia molecular limitan la reconstrucción por rutas evidenciales distintas. Los cambios anidados en regiones genómicas permiten probar más que el parecido visible. La recombinación, la variación ancestral, el flujo génico y la transferencia horizontal explican por qué las historias de los genes no necesariamente coinciden con los árboles de especies.
La estratigrafía y la datación física restringen cuándo pudo haber vivido un antepasado propuesto; importan el material fechado y su asociación. El tiempo profundo proporciona generaciones; la trayectoria requiere una reconstrucción aparte. Del mismo modo, el último antepasado común de los organismos supervivientes no tiene por qué ser la primera organización capaz de evolucionar.
Variación, selección y entornos construidos
La mutación presenta sesgos moleculares, aunque por lo general es aleatoria respecto de las necesidades futuras. La recombinación redistribuye la variación; la duplicación permite la divergencia; la transferencia horizontal aporta material de otro linaje; la migración cambia la composición de la población. El desarrollo determina qué formas pueden producir estos cambios. La plasticidad permite respuestas que dependen de las condiciones, sin que toda respuesta adquirida se vuelva hereditaria automáticamente.
La selección concierne a diferencias heredables en la contribución reproductiva, no a una clasificación intercambiable de fuerza, longevidad o complejidad. En una población haploide grande con una frecuencia de la variante de p, un rendimiento relativo de 1+s y un rendimiento alternativo de 1, la frecuencia siguiente es el rendimiento ponderado de la variante dividido por el rendimiento medio de la población:
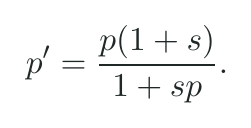
Con p=s=0.1, la frecuencia siguiente esperada es de aproximadamente 0.1089, suponiendo condiciones constantes y ausencia de mutación, migración o ruido de muestreo.
La reproducción finita añade deriva por muestreo. En una muestra haploide ideal de N descendientes independientes,
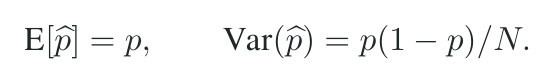
Con p=1/2, la desviación estándar es de cinco puntos porcentuales para N=100 y de medio punto para N=10,000. Una variante beneficiosa no necesariamente se propaga en cada ocasión.
Los organismos también modifican las condiciones heredadas mediante la excavación de madrigueras, la vegetación, la química microbiana y otras actividades. La simbiosis aporta capacidades y nuevas dependencias. Laland y sus colegas dan mayor importancia causal al desarrollo, la plasticidad y los entornos construidos; Futuyma muestra cómo la genética de poblaciones ya incorpora muchos de sus efectos. Una explicación más completa conecta estas retroalimentaciones con la variación, la herencia y las consecuencias reproductivas. Los organismos activos cambian las condiciones de selección, y el razonamiento poblacional sigue las consecuencias. Las predicciones adicionales y su éxito en casos particulares determinan si una ampliación propuesta aporta poder explicativo.
La organización previa limita y posibilita los cambios posteriores. Una alteración útil puede perjudicar otra función; una estructura conservada puede destinarse a un nuevo papel. La contingencia y la convergencia revelan aspectos distintos de estas limitaciones. Las funciones nuevas y las relaciones ecológicas son logros reales de un mecanismo que, por sí mismo, no tiene previsión.
Novedad recuperable mediante experimentos
En el experimento de evolución bacteriana a largo plazo, doce poblaciones recibieron glucosa y citrato limitados en condiciones oxigenadas. En una población apareció el uso del citrato para la generación 31,500; al principio fue débil y luego se perfeccionó. La reactivación de antepasados congelados mostró que los trasfondos posteriores producían descendientes capaces de usar citrato con mayor facilidad. El análisis genómico identificó una duplicación que puso un transportador existente bajo el control de un promotor activo en presencia de oxígeno; cambios posteriores mejoraron su uso. Varios trasfondos respaldaron rutas accesibles, de modo que la contingencia no implica una única secuencia necesaria.
Keefe y Szostak analizaron aproximadamente 6×10^(12) proteínas con ochenta posiciones aleatorias de aminoácidos y aislaron cuatro moléculas de unión a ATP no relacionadas. La traducción, la exhibición, la selección, la amplificación y la variación introducida después aportaron el marco experimental. El resultado muestra que es posible llegar a la unión de ATP mediante el muestreo de secuencias aleatorias.
Expresión, reclutamiento y retención
La expresión pone un producto a disposición; la interacción le da consecuencias; la selección puede conservar algunas de ellas. Carvunis y sus colegas identificaron cerca de 1,900 candidatos a protogenes de levadura, entre secuencias sin anotación y genes establecidos. Muchos no mostraban selección purificadora detectable, mientras que un subconjunto sí mostraba conservación frente a cambios de aminoácidos. La traducción variaba según las condiciones, de modo que la expresión por sí sola no demostraba una función.
Los organismos digitales de Lenski y sus colegas adquirieron operaciones lógicas complejas mediante operaciones más simples que recibían recompensa. Sus historias inspeccionables muestran cómo funciona la adquisición acumulativa dentro de reglas computacionales especificadas.
Babina y sus colegas recuperaron tres proteínas hidrófobas de cincuenta aminoácidos como máximo, que restauraban el crecimiento en bacterias carentes de serB. El aumento de la expresión de hisB reclutó la actividad de una fosfatasa alternativa ya existente; la unión de Hdp1 al ARN regulador respaldó uno de los mecanismos. Un producto nuevo y corto puede beneficiar a una célula al cambiar la disponibilidad de una capacidad anterior.
En el experimento de evolución bacteriana a largo plazo, uz-Zaman y sus colegas encontraron secuencias de inserción y reordenamientos que reclutaban promotores existentes hacia regiones antes silenciosas, con mayor frecuencia que la creación de promotores nuevos en los casos examinados. Los modelos y las comparaciones entre levaduras y moscas de la fruta de Iyengar y sus colegas encontraron un marco de lectura antisentido favorable a la adquisición y retención de marcos abiertos de lectura. La codificación establecida que se solapa restringe la disponibilidad de candidatos; el efecto de la proteína resultante sobre la aptitud biológica requiere pruebas independientes.
Frumkin y sus colegas recuperaron miles de secuencias contra fagos en bibliotecas de expresión parcialmente aleatorizadas. Los productos caracterizados reclutaban la producción de cápsula inducida por estrés o reducían el receptor de fagos OmpC; algunos actuaban mediante ARN. Las bibliotecas con sesgo de codones y el hospedador vivo proporcionaron las condiciones para expresar esas secuencias y seleccionarlas por protección.
Un estudio de poblaciones naturales de uz-Zaman y Ochman aportó una presión en sentido contrario: muchas proteínas sin anotación daban pocas señales de avanzar hacia una función, y solo se reconstruyó rigurosamente la aparición de novo de un protogen en una historia bacteriana muestreada. Tanto los parientes faltantes como la dificultad de recuperar los orígenes pueden operar en ambos sentidos, por lo que la tasa de nacimiento de novo de genes sigue siendo una cuestión de medición abierta. La expresión frecuente y el reclutamiento funcional posterior siguen siendo tasas distintas.
El problema del origen acoplado
El origen de la vida requiere producción, persistencia, concentración, uso de energía, catálisis, herencia y asociación de los productos con aquello que hereda sus efectos. Estas operaciones se condicionan entre sí, en vez de formar una lista de verificación sencilla. La unión estable a una plantilla puede impedir la separación; una frontera protectora puede excluir sustratos; la síntesis puede producir inhibidores.
Un precursor no tiene que reproducir la división moderna del trabajo celular. El ARN puede combinar funciones hereditarias y catalíticas; los poros o superficies pueden proporcionar confinamiento; los ciclos ambientales pueden alternar las condiciones antes de que se desarrolle la regulación interna. Pero las separaciones, la reposición y los ciclos impuestos en un experimento son contribuciones en sí mismas, y hay que explicar sus equivalentes en el entorno propuesto.
Si un catalizador promueve el crecimiento de un compartimento y permanece con sus descendientes, la variación puede alterar su propia continuidad reproductiva. Si se difunde libremente y beneficia a todos los compartimentos, cambia la relación de herencia. Los experimentos sobre el origen resultan más explicativos cuando la química de precursores, la copia, el uso de energía y la asociación espacial se conectan bajo condiciones compatibles o secuenciales.
Precursores y acoplamiento químico
Powner, Gerland y Sutherland demostraron la síntesis de ribonucleótidos pirimidínicos activados mediante intermediarios, en vez del ensamblaje directo de una base, un azúcar y un fosfato ya terminados. El fosfato guio las reacciones anteriores; un primer intermediario superó un rendimiento del ochenta por ciento, mientras que la fosforilación posterior y el tratamiento con radiación ultravioleta seleccionaron derivados de citidina y uridina. El rendimiento inicial no fue un rendimiento global de ARN. Las condiciones por etapas forman parte de lo que explica el experimento.
Patel y sus colegas conectaron precursores de ARN, aminoácidos y lípidos mediante química cianosulfídica que empleaba luz ultravioleta, poder reductor y vías asistidas por cobre. Un intermediario relacionado con el ARN se conectó con rutas de precursores de glicerol y aminoácidos; una interconversión produjo un rendimiento del cincuenta y nueve por ciento. Su escenario de corrientes y depósitos reúne estas reacciones respaldadas en una secuencia geológica propuesta.
Una vía de construcción de membranas conecta esta química con los compartimentos. Cho y sus colegas mostraron que la cisteína reacciona espontáneamente con dos tioésteres de cadena corta C8 en agua para formar vesículas de lípidos diacilo. La sílice catalizó la reacción, y las vesículas siguieron siendo compatibles con ribozimas funcionales.
Abil y sus colegas construyeron luego un puente distinto: liposomas con un sistema de transcripción, traducción y replicación recombinante mantuvieron una plantilla lineal de ADN que codificaba la ADN polimerasa Φ29 y la proteína terminal, junto con proteínas purificadas de unión al ADN monocatenario y bicatenario y nucleótidos suministrados. Las rondas intermitentes o semicontinuas produjeron mutaciones adaptativas en diez rondas. El resultado demuestra evolución darwiniana compartimentada dentro de un sistema bioquímico altamente diseñado, que incluía maquinaria purificada y redistribución por congelación y descongelación.
Singh y sus colegas demostraron la aminoacilación del ARN mediada por tioésteres cerca de un pH neutro. Las cadenas simples exponían sitios de unión internos; la organización en dúplex los protegía y favorecía la unión terminal. Otra química realizada en condiciones de congelación produjo un tioéster pertinente con un rendimiento del cuarenta y ocho por ciento, mientras que las pruebas posteriores de unión usaron concentraciones de reactivos considerablemente mayores. Un cambio en la química de activación permitió productos peptidilados, por lo que la aminoacilación y la formación de péptidos siguen siendo pasos distintos.
Estos resultados identifican selectividad y acoplamiento accesibles, pero todavía hay que integrar el suministro, la concentración, la compatibilidad y la renovación. Las reacciones de aminoacilación y de ARN peptidilado establecen operaciones químicas que se usan en la traducción. Establecer una correspondencia heredada que dirija la secuencia peptídica es un logro adicional y distinto.
Copia recurrente y persistencia
La fidelidad de secuencia y la herencia recurrente son logros distintos de la longitud del polímero. Duzdevich y sus colegas secuenciaron productos de extensión junto con sus plantillas, y localizaron las discrepancias y los puntos de detención. Un control con una discrepancia deliberada registró extensión en el 6.1 por ciento de los pares de lecturas, y más del noventa y ocho por ciento de las discrepancias observadas estaban en la primera posición. Era una condición de control, no una tasa de error prebiótico universal.
Zhou y sus colegas emplearon cadenas invasoras cortas para desplazar un complemento bloqueador y restablecer la extensión del cebador, ausente sin la cadena invasora. La síntesis extendida más sólida utilizó análogos reactivos que producían 3'-NP-DNA en una plantilla de ARN. Las cadenas y sustratos suministrados demuestran un mecanismo de desplazamiento, no un ciclo autónomo de copia solo con ARN.
Attwater y sus colegas combinaron una ribozima polimerasa diseñada con sustratos de trinucleótidos activados. Los tripletes posibilitaron la síntesis y limitaron la rehibridación inmediata de las cadenas. La separación impuesta por ácido y calor, la neutralización, la congelación y el reabastecimiento permitieron que los productos de un ciclo sirvieran de plantillas en ciclos posteriores. Las clases de productos más cortas que surgieron alcanzaron una amplificación de hasta 60,000 veces, tras tener en cuenta la dilución; experimentos separados copiaron un segmento de veintinueve nucleótidos del catalizador y posibilitaron el inicio sin cebador. El resultado es amplificación recurrente y autocopia parcial, no renovación del catalizador completo y de la química de soporte.
El modelo de genoma circular virtual de Burger y Gerland distribuye una secuencia mayor entre cadenas superpuestas. Las concentraciones, la longitud y las preferencias por la adición de materia prima determinan el ensamblaje correcto frente a la unión propensa a errores. Las cadenas informativas más largas a menor concentración y la adición preferencial de monómeros definen regímenes que se pueden someter a pruebas químicas.
Un modelo sencillo de secuencias exactas muestra por qué estos requisitos están acoplados:
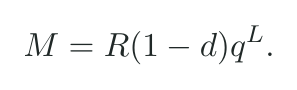
Con R copias por cada progenitor reemplazado, una longitud de L, fidelidad independiente por posición de q y probabilidad de supervivencia de 1-d, se esperan M descendientes exactos supervivientes. Para R=2,d=0.1,L=100, cambiar q de 0.99 a 0.999 cambia M de aproximadamente 0.659 a 1.629. Las secuencias reales toleran algunos cambios, los errores están correlacionados y los fragmentos cooperantes pueden distribuir los requisitos. El modelo identifica la dependencia.
Una vía hacia la evolución darwiniana debe unir la variación funcional heredable, la propagación diferencial y la organización que sostiene ambas. Las explicaciones centradas en el ARN, metabólicas y compartimentales aportan operaciones distintas a este problema. Es preferible integrarlas con restricciones experimentales en vez de tratar a cada una como una explicación rival completa del origen: la herencia necesita energía y asociación espacial, mientras que la química útil necesita una vía de herencia. Las pruebas actuales respaldan componentes sustanciales sin seleccionar un escenario geoquímico completo, y una explicación teológica no puede aportar las concentraciones, los catalizadores ni la secuencia de entornos que faltan. La creación da motivo para recibir las facultades descubiertas como causas reales; el argumento comparativo a favor de un Creador procede del argumento más amplio, no de esos detalles faltantes.
Ascendencia humana en varios sentidos
Los fósiles de Jebel Irhoud combinan rostros, mandíbulas y dientes alineados con Homo sapiens primitivo o reciente, con rasgos craneales más ancestrales. Los pedernales calentados asociados produjeron una datación de 315±34 mil años mediante termoluminiscencia, que se comparó con la datación basada en un diente. Por tanto, los rasgos y las historias de las poblaciones no tienen que cambiar al mismo tiempo.
Thomas Quarry I, en Casablanca, aporta una comparación africana más profunda. Hublin y sus colegas fecharon en unos 773 mil años los nuevos homininos de la localidad ThI-GH y encontraron una mezcla de rasgos primitivos con otros parecidos a los de grupos posteriores de Homo sapiens y de grupos arcaicos euroasiáticos. Los fósiles fortalecen la hipótesis de una población ancestral africana anterior a Jebel Irhoud, mientras que su morfología en mosaico desaconseja imaginar una única línea humana simple y lineal.
La coalescencia genética rastrea copias ancestrales específicas de cada región. La recombinación permite fechas distintas entre regiones; el tamaño efectivo de la población describe un proceso genético idealizado, no un censo. Gronau y sus colegas infirieron un tamaño efectivo ancestral cercano a 9,000 bajo supuestos demográficos calibrados.
Ragsdale y sus colegas favorecieron la hipótesis de troncos africanos débilmente diferenciados y conectados por flujo génico recurrente. El otro modelo, de Cousins, Scally y Durbin, infirió una separación profunda hace cerca de 1.5 millones de años y una reunificación hace unos 300,000 años, con contribuciones de alrededor del ochenta y el veinte por ciento. Ambos respaldan la existencia de estructura ancestral; la diferencia entre los espacios de modelos deja abierta su arquitectura. No se puede equiparar sin más esas poblaciones con los grupos fósiles designados.
El ADN antiguo ahora también permite esclarecer parte del Holoceno, no el origen profundo en sí. Jakobsson y sus colegas secuenciaron veintiocho individuos antiguos del sur de África, fechados entre 10,200 y 150 años calibrados antes del presente; los genomas de más de aproximadamente 1,400 años quedaban fuera de la variación de las muestras actuales, mientras que la región mostraba poca estratificación espacial o temporal durante unos 9,000 años. El estudio infiere un flujo génico hacia el exterior iniciado hace más de 8,000 años y un flujo génico hacia el interior solo después de hace unos 1,400 años. Estos datos recuperan una diversidad y continuidad del Holoceno que antes estaban ocultas.
La ascendencia genealógica es filiación, aunque no sobreviva ADN identificable de un antepasado. Un árbol genealógico tiene 2^g lugares g generaciones atrás, pero las personas repetidas y las rutas superpuestas hacen que esos lugares representen menos de 2^g individuos distintos. La contribución autosómica esperada a lo largo de una ruta sin repeticiones es 2^(-g), no material cuya supervivencia esté garantizada. Los antepasados de los linajes mitocondrial y del cromosoma Y trazan rutas más estrechas, y no necesariamente eran las únicas personas vivas en su época ni una pareja.
Los modelos estructurados de Rohde, Olson y Chang permiten antepasados genealógicos universales solo unos pocos milenios atrás, bajo condiciones adecuadas de migración y conectividad. El aislamiento continuo impide una ascendencia externa reciente. Una pareja fundadora única permite como máximo cuatro copias autosómicas iniciales en una localidad; una pareja dentro de una población mayor deja intactas otras contribuciones genéticas. La designación pactual añade una relación distinta.
La conducta antigua y el alcance de sus pruebas
Paige y Perreault midieron la complejidad de los procedimientos de talla de piedra a lo largo de 3.3 millones de años, en comparación con los primates, los seres humanos sin experiencia y la talla aleatoria. Los aumentos sostenidos alrededor de 600,000 años atrás, y algunas tecnologías que se acercaban al doble del nivel de referencia de los primates alrededor de 300,000 años atrás, respaldan la cultura acumulativa según esa medida.
El entierro de Panga ya Saidi, fechado hace 78.3±4.1 mil años, contiene los restos de un niño de unos dos años y medio a tres. Los sedimentos de la fosa, los restos articulados y las pruebas de descomposición respaldan un entierro deliberado, aunque no permiten recuperar las creencias de quienes lo lloraron. El cráneo 17 de la Sima de los Huesos, de unos 430,000 años, presenta dos fracturas deprimidas perimortem similares y con trayectorias distintas. Ese patrón respalda la hipótesis de golpes letales intencionales repetidos, aunque deja desconocidos los motivos.
Las capacidades actuales informan las comparaciones sin fechar su primera aparición. Mobbs y sus colegas hallaron que la proximidad de una amenaza desplazaba la actividad humana hacia la sustancia gris periacueductal, especialmente cuando se anticipaba un dolor mayor. Anderson y sus colegas observaron en torno a una muerte los cuidados de chimpancés, las pruebas de vida, la presencia junto al cuerpo, la limpieza, la agresión y la evitación posterior del lugar. Estas observaciones revelan respuestas defensivas y sociales sin atribuir una misma emoción humana a todos los comportamientos.
La planificación, el apego, la conducta semejante al duelo y la violencia están dentro del alcance de las pruebas. Las criaturas antiguas cuyas vidas reconstruimos tenían bienes y vulnerabilidades propios. Cualquier persona humana entre ellas tenía la dignidad plena descrita en el capítulo 13, independientemente de la tecnología o de la escasez de sus restos.
Adán dentro de una historia encarnada
Un comienzo pactual real no tiene por qué ser una pareja genética exclusiva y reciente. Según la herencia ordinaria, ese cuello de botella sencillo afronta pruebas genéticas sólidas en su contra; una pareja dentro de una población más amplia deja intactas otras contribuciones genéticas. Las ubicaciones genealógicas y las históricas más profundas requieren sus propias pruebas. Las lecturas arquetípicas y corporativas explican el significado universal de la historia sin ubicar por sí solas un suceso inicial.
La razón canónica para un comienzo real reside en la obra causal de la transgresión en Romanos 5 y en la historia ordenada, desde lo terrenal hasta la resurrección, de 1 Corintios 15, leídas junto con las genealogías de Génesis. Usar una historia solo como tipo no establece su historicidad. Este juicio depende de la autoridad apostólica defendida en los capítulos 21 y 24; el capítulo 17 desarrolla la comparación con las lecturas arquetípicas. El significado universal y un acto inicial pueden pertenecer a la misma historia sin implicar un monopolio genético.
La jefatura es una relación pactual, no equivalente a la ascendencia genética exclusiva. La privación y mortalidad heredadas también difieren de los actos culpables propios de personas posteriores. Si hubo personas antes de Adán, su dignidad era plena y sus circunstancias no les conferían culpa. Las pruebas de transgresiones responsables anteriores a la fecha propuesta para la primera defección exigirían revisar la fecha o la función de Adán, en vez de redefinir como no personas a esos transgresores anteriores.
La pérdida a través del tiempo profundo
Los fósiles documentan ataques antiguos y reparaciones mediante restos digestivos, perforaciones y cicatrices. El crecimiento posterior respalda la supervivencia después del daño; las fracturas no sanadas son más ambiguas. El reconocimiento, el transporte, la preservación y el muestreo afectan las estimaciones de prevalencia; el registro acumulativo de depredación permanece.
Un peroné de Centrosaurus de hace aproximadamente 77.0--75.5 millones de años, identificado en un principio como una fractura sanada, mostró un crecimiento anormal invasivo compatible con el osteosarcoma según los estudios por imágenes, los cortes delgados y las comparaciones. Por tanto, el espécimen identifica una patología individual grave mucho antes de la humanidad.
Green y sus colegas relacionaron estadísticamente el momento y las tasas de los basaltos de inundación continental con las extinciones, y propusieron efectos volcánicos en el ambiente. Henehan y Witts cuestionaron la extensión de esa propuesta a sucesos posteriores, particularmente al límite Cretácico--Paleógeno, dadas las condiciones entonces distintas de los océanos y el ciclo del carbono. Las causas siguen siendo específicas a cada suceso, mientras que las pérdidas quedan registradas independientemente.
La nocicepción procesa estímulos dañinos; el dolor añade una experiencia desagradable. Los experimentos de Crook con pulpos combinaron evitación de lugares asociados con una lesión, conducta protectora, actividad neural y respuestas a la anestesia local. Schnell y sus colegas conservaron la convergencia de las pruebas, a la vez que señalaron que faltaba un control equiparado de solución salina en animales lesionados para la comparación del condicionamiento al alivio. Su evaluación de 2026 halló pruebas sólidas para pulpos y sepias, pruebas considerables para calamares y muy poca investigación para determinar si los nautilos tienen sentiencia. Estos son grados de evidencia, no niveles de experiencia ni hallazgos que muestren que los animales poco estudiados no pueden sentir.
Determinar si las criaturas extintas tenían experiencia subjetiva requiere más inferencias anatómicas y evolutivas. Cuando hay fundamento para afirmar que hubo experiencia, los beneficios evolutivos en otros organismos no responden a la pérdida del sujeto afectado. La muerte de una presa alimenta a un depredador sin restaurar a la presa; la extinción puede abrir nichos mientras pone fin a vidas reales. Importa la escala: en la mayoría de los linajes, la mayoría de las crías mueren antes de reproducirse, y las extinciones masivas eliminaron grandes fracciones de las especies que vivían entonces; por eso, las pérdidas en cuestión son la regla de esta historia, no sus excepciones.
El propósito en historias que podrían haber sido distintas
La contingencia evolutiva cambia qué criaturas y facultades llegan a ser reales. No hace irreales sus facultades ni deja su bien a la preferencia de un observador. Una vez que existe una vida organizada, la nutrición, el desarrollo, las lesiones y la reparación tienen consecuencias para esa vida. La organización heredada y su entorno determinan qué actividades están disponibles; luego se puede investigar causalmente si esas actividades sostienen o dañan al sujeto. Una facultad puede tener un origen contingente y una contribución determinada.
Un caso observado concreta la norma. Saad y sus colegas hallaron que las planarias cavernícolas conservaban ojos pequeños y funcionales, a la vez que producían menos progenitores dirigidos a formar ojos y los regeneraban más despacio que las planarias de superficie usadas como comparación. Sigue abierta la explicación evolutiva, entre selección y relajación de la selección purificadora. Un ojo más grande y de aspecto más ancestral no sería por ello una cura, y la persistencia del ojo actual no certifica que sea óptimo. La pregunta pertinente es qué posibilitaría o impediría un cambio en estos animales dadas sus condiciones. La evolución explica cómo se hicieron reales sus facultades; sigue abierta la investigación sobre su contribución a la actividad del sujeto.
Los experimentos con citrato aportan un caso observado más acotado. Los trasfondos heredados anteriores cambiaron cuáles innovaciones eran accesibles, mientras que la disposición final del transporte permitió usar un recurso nuevo. Se puede evaluar su contribución aunque esa disposición no necesariamente haya evolucionado. Si otra historia hubiera producido otra ruta metabólica, el bien pertinente pertenecería a los organismos resultantes y sus dependencias reales. Esta comparación no presupone que los mismos individuos existirían con ascendencias distintas, ni que todo linaje posible necesariamente aparecería. Aplica la misma pregunta a los sujetos de cada historia: ¿qué puede recibir y hacer esta vida, y qué la posibilita o la lesiona? Una vida mejor de otra criatura en una historia alternativa no repararía por ello la lesión de una criatura real.
Un buen dador puede tener como propósito a estos destinatarios vivos y su propia participación en los bienes de las criaturas. Los organismos se desarrollan mediante recursos heredados, modifican hábitats, cuidan de sus crías y, a veces, se reparan a sí mismos. Su actividad contribuye a producir lo que reciben y transmiten. Esta participación da una razón positiva para crear a través de la historia, sin requerir un inventario fijo de especies ni una tendencia evolutiva hacia la complejidad máxima.
El cuidado de Dios concierne entonces a las criaturas reales, sus facultades y lo que les ocurre. Una capacidad para alimentarse sirve a la vida de un depredador; su ejercicio puede perjudicar gravemente la vida de una presa. Ni el éxito ecológico ni la aparición posterior de los seres humanos hacen de la presa un diseño provisional cuyo sufrimiento pueda omitirse. La aleatoriedad respecto de las necesidades futuras describe la variación, no su propósito último. Del mismo modo, un propósito para los destinatarios vivos no justifica asignar un fin bueno a cada suceso dañino.
La sentiencia añade otra relación: la criatura puede experimentar el bien que recibe. La nutrición, el movimiento y el apego pueden importar tanto para la continuidad de su vida como para la forma en que la vive. Es posible investigar experimentalmente esa conexión. En el estudio de dieciséis participantes de Aizawa y sus colegas, el mismo calor localizado se juzgó igual de caliente mientras el calentamiento y el enfriamiento de todo el cuerpo cambiaban si se sentía agradable. La condición corporal y el valor sentido están conectados, pero no son la misma medición.
La búsqueda y el disfrute propios de un animal de la nutrición, el movimiento o la compañía dan a una explicación de un dador bueno una razón para esperar cierto acoplamiento entre el sentir y la función antes de la agencia moral. Esto da al teísmo una razón para esperar alguna conexión entre el sentimiento y la función; no establece una ventaja comparativa de probabilidad ni la necesidad de una experiencia aversiva. Persisten los casos más difíciles de Draper: la agonía que continúa después de que ya es imposible toda respuesta protectora puede explicarse biológicamente, y aun así sigue siendo evidencia contra un gobierno benevolente. El capítulo 26 compara ese patrón con su hipótesis de indiferencia.
Un naturalista puede explicar estos mecanismos y reconocer los mismos bienes. La afirmación cristiana adicional es que el cuidado del dador persiste cuando fallan los mecanismos útiles. Los argumentos a favor de un dador bueno y de la historia e identidad de Cristo aportan la justificación: la renovación corporal afirmada en Cristo es el cumplimiento que recibe una vida encarnada real. El capítulo 35 extiende la indagación a los animales heridos mediante la liberación prometida para la creación y el cuidado particular de Dios. Esa expectativa depende del promitente, cuya identidad y confiabilidad se evalúan de forma independiente. Los sucesores más sanos no darían bien por sí mismos a la criatura que sufrió.
Entonces, ¿por qué permitir esta ruta y distribución de pérdidas graves cuando parecen posibles otras historias? La participación de las criaturas identifica un bien propio de la historia, sin mostrar que cada costo fuera necesario para darlo. La finitud y la dependencia pueden ser buenas antes de la consumación; la lesión no sanada es una privación dentro de ese bien. Esta distinción evita tanto desechar la vida evolutiva como una creación fallida como descartar a quienes sufren como un precio aceptable. Los capítulos 26 y 35 buscan la respuesta esperada a esas pérdidas reales.
El alcance teológico de esta historia
Génesis 1 presenta la vegetación como alimento dentro de su retrato de la creación; Salmo 104 y Job incluyen depredadores salvajes en la provisión presente; Isaías 11 promete la paz entre animales bajo el reinado venidero. El don, el gobierno y el horizonte sanado pertenecen al relato canónico de una sola creación.
Los primeros lectores entendieron esa historia de otra manera. Teófilo relacionaba la ferocidad animal con la transgresión; Basilio consideraba a los carnívoros dentro de la provisión divina; Ireneo esperaba que la paz de Isaías incluyera animales renovados y la dieta original. La cronología de Teófilo entra en conflicto con la depredación registrada mucho antes de los seres humanos, mientras que Basilio no describía la evolución moderna. La continuidad reside en la creación buena y en la renovación encarnada, cuyo curso intermedio ahora conocemos mejor.
Romanos 5 sigue el pecado y la muerte desde un ser humano hasta los seres humanos; 1 Corintios 15 responde a la muerte en Adán con la vida encarnada en Cristo. Génesis 3 vincula el exilio de la vida con el regreso al polvo, mientras que Hebreos 2 distingue el poder de la muerte del temor esclavizante. Por tanto, la muerte adámica nombra la muerte corporal bajo el reinado personal y pactual del Pecado. La misma pérdida encarnada adquiere una relación con la alienación, la acusación y el juicio; la distinción concierne a su condición histórica y a su horizonte final.
La distinción impide que la depredación prehistórica se convierta en prueba de una transgresión humana anterior. El capítulo 17 explica la relación adicional en la que la mortalidad se convierte en instrumento de ocultamiento, coacción y desconfianza; el capítulo 22 desarrolla la liberación de ese reinado. La muerte biológica, el temor a la pérdida y el uso culpable del temor requieren explicaciones distintas.
La resurrección vuelve provisional la muerte corporal. La segunda muerte de Apocalipsis ocurre después de la resurrección y el juicio; nombra una relación distinta de la mortalidad prehistórica ordinaria.
La creación sujeta contra su voluntad de Romanos 8 gime en espera de la liberación junto con los cuerpos humanos redimidos. Su sufrimiento es sujeción a la futilidad, no rebelión moral. El mal humano además se propaga por la tierra y la vida compartida, como describen Génesis, Levítico, Oseas e Isaías. El canon no describe una ruta comparable por la que una caída angélica hubiera dado forma a la historia fósil.
La descendencia y la novedad describen la formación de las facultades; el beneficio y la lesión describen lo que su ejercicio significa para sus sujetos. La liberación prometida concierne a esta creación real, incluidos quienes sufren, y no solo a la productividad de las poblaciones supervivientes. El próximo capítulo sigue una facultad más de esta historia: la capacidad de una criatura para experimentar su mundo, aprender de él y actuar según lo que llega a conocer.
Investigación relacionada
Compara este capítulo con los documentos fuente o estudia sus referencias bíblicas.
Chapter comments