Un ser vivo realiza parte del trabajo que hace posible su actividad ulterior. Produce límites, regula intercambios, reemplaza componentes, desarrolla capacidades y repara daños. Estas actividades mantienen una vida particular mediante materia cambiante. El alimento puede fortalecer esa vida, una herida puede perjudicarla y una reparación puede restaurar una actividad y dejar otra pérdida.
Continuidad a través del recambio
Las membranas regulan selectivamente el movimiento por medio de canales, transportadores y bombas. Los gradientes químicos y eléctricos que se mantienen sustentan el transporte y la producción de ATP; el metabolismo aporta energía, síntesis, mantenimiento y eliminación. La maquinaria que mantiene estas relaciones también se produce y reemplaza mediante ellas.
Montévil y Mossio describen esta dependencia recíproca como cierre de restricciones. Una restricción canaliza un proceso y conserva su estructura pertinente durante la escala temporal de ese proceso: una enzima cataliza una reacción sin consumirse; un vaso conduce la sangre sin reconstruirse durante cada paso. Las estructuras necesitan mantenimiento a más largo plazo. En el cierre, las restricciones contribuyen a producirse o mantenerse unas a otras mediante los procesos que organizan. Los vasos proporcionan células cuyas actividades mantienen los vasos. El cierre puede darse en los niveles celular y organísmico; los autores niegan explícitamente que por sí solo defina un organismo.
Esa autonomía depende de nutrientes, energía y entorno. Mossio, Montévil y Longo distinguen entre mantener una disposición particular y conservar la organización mediante disposiciones modificadas: una nueva restricción puede alterar otras e integrarse en un todo viable o, por el contrario, destruirlo.
Un conjunto de materiales puede permanecer constante mientras cambia su contenido. Un modelo simple de entrada y eliminación hace visible la distinción:
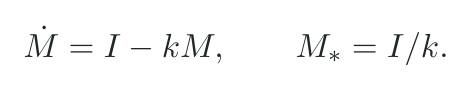
Sin entrada etiquetada y sin reciclaje, el material etiquetado inicialmente sigue Q(t)=Q(0)e^(-kt). Por tanto, el conjunto puede permanecer en M_* aunque se reemplacen sus contenidos individuales. El recambio biológico distingue además las moléculas de las células, y varía mucho entre tejidos. Sender y Milo encuentran que el reemplazo celular diario se concentra sobre todo en poblaciones sanguíneas e intestinales, lo que socava la idea de un «reemplazo del cuerpo» universal en un plazo fijo.
La continuidad organizativa exige conexiones útiles, no solo conservar la forma. El tejido nuevo en el lugar equivocado puede obstruir una función; un cuerpo aparentemente intacto puede perder la capacidad de responder. La autonomía es actividad organizada dentro de una dependencia ambiental. La latencia también pertenece a las historias de vida, sin exigir que toda capacidad se manifieste de manera continua.
Regulación y capacidad adquirida
La retroalimentación negativa se opone a una desviación, pero una corrección proporcional no necesariamente la elimina. Un modelo simple es
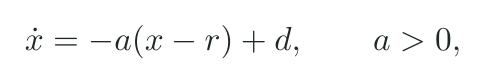
y una perturbación constante produce x_*=r+d/a: la corrección proporcional deja un estado estable desplazado, en vez de restaurar exactamente r. Los efectores reales añaden saturación, demora y costos. Un objetivo cambiante y la preparación anticipatoria coordinan las respuestas con la actividad y la demanda prevista. Sterling desarrolla esta idea bajo el nombre de alostasis, y las explicaciones más amplias de la homeostasis incluyen características similares.
Producir componentes y coordinar su uso son logros distintos. Bich desarrolla esta diferencia en una explicación de la finalidad biológica: los mecanismos reguladores seleccionan entre las actividades disponibles a medida que cambian las condiciones y las orientan hacia condiciones que mantienen el sistema vivo. Esto vincula lo que el organismo necesita con la manera en que ajusta su actividad.
La temporización también está organizada internamente. Las mutaciones de moscas de la fruta estudiadas por Konopka y Benzer produjeron arritmicidad o períodos cercanos a las diecinueve y veintiocho horas en la eclosión y la locomoción, evaluadas en la oscuridad después de ciclos de luz y oscuridad. Los componentes internos alterados cambiaron los ritmos más allá de la estimulación externa inmediata.
La exposición inmunitaria cambia las respuestas futuras mediante poblaciones que se multiplican y persisten. La maduración de la afinidad de las células B combina mutación y selección; los linfocitos de memoria conservan capacidades de respuesta sin recuerdo consciente. Otras formas de memoria celular operan mediante estados de cromatina y metilación del ADN que estabilizan la expresión a través de las divisiones celulares.
Los socios también pueden aportar condiciones causales: al introducir bacterias filamentosas segmentadas en ratones libres de gérmenes se indujeron células Th17 intestinales. Esta intervención definida establece una contribución microbiana a una respuesta interna. La calibración hormonal, las poblaciones inmunitarias, los estados de la cromatina y los socios microbianos conservan así historias distintas. Secuencias heredadas similares no tienen por qué producir capacidades idénticas.
La secuencia y su interpretación molecular
La replicación, la transcripción y la traducción son procesos físicos distintos. Para aislar la correspondencia entre una secuencia codificante y un péptido, considérese esta región artificial en el marco de la traducción eucariota según el código estándar y con el contexto de iniciación requerido:
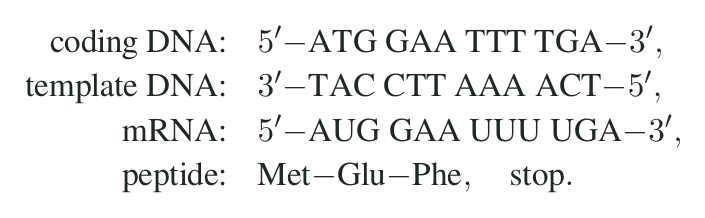
La correspondencia estándar asigna sesenta y un tripletes a aminoácidos y tres a la terminación; otros códigos difieren, por ejemplo, el UGA mitocondrial que codifica triptófano. El marco de lectura, el contexto circundante y la sustitución particular determinan el efecto de un cambio.
Las aminoacil-ARN sintetasas reconocen aminoácidos y ARN de transferencia, consumen ATP para activarlos y unen la carga. El reconocimiento del anticodón y la carga correcta son requisitos distintos. Los ribosomas organizan el ARN mensajero, los ARN de transferencia cargados, los factores de elongación, los pasos impulsados por GTP, la formación de péptidos y los factores de liberación. El ARN ribosómico forma el núcleo catalítico, como demuestran las estructuras arqueanas de Nissen y sus colegas.
El ARN puede servir de molde, adaptador, catalizador, componente estructural, regulador o secuencia hereditaria en los virus. La transcripción inversa no refuta el dogma central de Crick, que concierne a las direcciones de transferencia detallada de secuencias, en particular a la ausencia de traducción inversa desde la secuencia de una proteína hasta un ácido nucleico.
La actividad de una proteína depende además del plegamiento, las chaperonas, los socios, las modificaciones, los cofactores y la ubicación. La secuencia exacta de una cadena por sí sola no puede especificar el comportamiento del sujeto que la porta; la célula que metaboliza y se desarrolla proporciona las condiciones para su uso.
Fidelidad mediante procesos falibles
La replicación del ADN combina selección inicial, corrección de pruebas por exonucleasas y reparación de errores de apareamiento. Si se tratan las etapas como filtros condicionales, una trayectoria esquemática es
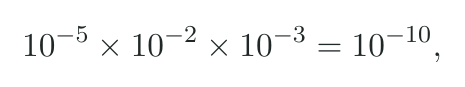
dentro del intervalo más amplio informado de 10^(-9)--10^(-11) por base copiada y por ronda. Los factores que aparecen después son probabilidades condicionales de que el error escape, de modo que la ilustración no necesita suponer que todas las vías de error son independientes. Aun así, los tipos de error y las vías de daño requieren análisis por separado.
La transcripción corrige errores mediante selección, retroceso y escisión, con la ayuda de factores como TFIIS para la polimerasa II. Chung y sus colegas utilizaron copias repetidas de fragmentos de ARN circularizados para distinguir los errores ya presentes en el ARN de muchos errores de secuenciación. Sus estimaciones de sustitución de la ARN polimerasa II fueron aproximadamente 2.9×10^(-6) en levaduras, 5.69×10^(-6) en moscas y 4.7×10^(-6) en fibroblastos humanos primarios sin tratar. Los cambios en los factores de fidelidad alteraron las mediciones, que atañen al ARN celular superviviente y no a la selección inicial de una enzima aislada.
La selección de doble tamiz de las sintetasas usa sitios diferenciados de activación y edición para discriminar aminoácidos similares, como la isoleucina y la valina, que es más pequeña. La edición, antes o después de la transferencia, protege la relación entre el ARN de transferencia y su carga; la decodificación ribosómica correcta no puede corregir todos los errores de carga que se hayan escapado.
La corrección cinética de pruebas ribosómica separa las etapas de selección a lo largo de la hidrólisis de GTP. La estabilidad relativa de la unión y las velocidades de reacción determinan la aceptación y el rechazo. Las estimaciones comunes de errores de sentido cercanas a 10^(-3)--10^(-4) por codón ocultan una gran variación: el reportero de lisina de Kramer y Farabaugh arrojó aproximadamente 3.6×10^(-3) para AGA y 3.8×10^(-4) para AAC, con controles de la actividad de la proteína alterada.
Los errores de replicación, ARN y péptidos tienen denominadores, persistencia y amplificación distintos. Bajo una probabilidad hipotética, independiente y uniforme de error e en L posiciones,
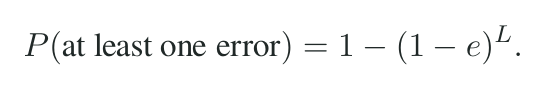
Para e=10^(-4),L=300, esto es aproximadamente un tres por ciento, no una probabilidad de pérdida de función ni de muerte celular. La fiabilidad pertenece a un sistema de trabajo impulsado y estratificado, incluidos sus errores residuales.
Genomas y sus recursos de referencia
La completitud de secuencias, la representación de poblaciones, la anotación reguladora y la explicación del desarrollo responden a preguntas distintas. El ensamblaje T2T-CHM13 de 2022 aportó unos 3.055 millones de pares de bases y autosomas sin brechas, además del cromosoma X, y añadió casi 200 millones de bases y 1.956 predicciones génicas, 99 de ellas codificantes de proteínas. Su origen en una mola hidatiforme casi homocigótica facilitó el ensamblaje; no incluía el cromosoma Y.
El ensamblaje del cromosoma Y HG002 de 2023 añadió una secuencia de 62.460.029 bases, más de 30 millones de bases además del Y de GRCh38 y 41 genes codificantes de proteínas adicionales, en su mayoría TSPY. Junto con CHM13, abarca 24 tipos de cromosomas extraídos de muestras distintas.
El borrador de pangenoma de 2023 utilizó 47 ensamblajes diploides faseados y añadió 119 millones de bases de secuencia polimórfica eucromática y 1.115 duplicaciones en relación con GRCh38. Las rutas alternativas reducen las limitaciones de una sola referencia, sin agotar la diversidad humana.
La síntesis de ENCODE de 2020 añadió 5.992 conjuntos de datos y registró 926.535 elementos humanos y 339.815 murinos candidatos cisreguladores, que cubrían el 7,9 y el 3,4 por ciento, respectivamente. Las firmas bioquímicas y los contextos muestreados definen estos candidatos; un muestreo más escaso en ratones afecta la cobertura. Estos porcentajes no estiman el ADN funcional total. La accesibilidad o la transcripción establece actividad; la perturbación establece una contribución causal; la conservación y la selección abordan la retención evolutiva. Las referencias mejoran la indagación sobre el organismo, en vez de reemplazarla.
El origen de las células complejas ofrece un ejemplo a gran escala de integración, en vez de una simple escalera de adiciones. El análisis filogenómico de 2025 de Santana-Molina y sus colegas sobre las enzimas del metabolismo central del carbono halló un patrón quimérico en el último antepasado común eucariota: las contribuciones arqueanas y alfaproteobacterianas se combinaron con aportes procariotas adicionales, y después se remodelaron por medio de la pérdida génica, la transferencia horizontal y la redirección subcelular durante más de dos mil millones de años. Los autores interpretan esta historia, reconstruida a partir de genomas actuales y de historias génicas dependientes del modelo, como apoyo a modelos simbióticos y sintróficos en los que el intercambio metabólico llegó a organizarse como herencia.
Mecánica de la regulación embrionaria
El desarrollo requiere una explicación tanto de la organización cambiante como de la organización mantenida. La crítica de Cuciniello concede que el cierre explica el automantenimiento fisiológico, pero pregunta cómo se originan y cambian los objetivos reguladores y qué hace que el organismo en desarrollo sea el mismo organismo. Los requisitos presentes de una oruga no explican por sí solos su transformación en una polilla.
Caldarelli y sus colegas estudiaron el epiblasto temprano de la codorniz. Su región posterior se contrae mientras se estiran sus territorios marginales anteriores, pero estos conservan proporciones más o menos estables a medida que las células se desplazan hacia atrás, en dirección a la línea primitiva. Su modelo acopla la contracción de actomiosina reforzada localmente con la inhibición a mayor distancia mediante tensión transmitida, resistencia circundante y un sesgo posterior inicial.
Las intervenciones separaron después el movimiento de sus consecuencias para el desarrollo. La reducción de la contractilidad con H1152 suprimió GDF1 y brachyury (BRA) en el margen, mientras que su aumento con calyculin A amplió su expresión. La inhibición por Ski-1 de la señalización mecanosensible asociada a SRC conservó el flujo del tejido, pero perjudicó la expresión, separando el movimiento mecánico de su acoplamiento al desarrollo por la vía propuesta de β-catenina.
Al principio, las mitades anteriores aisladas con láser no formaron las nuevas líneas predichas. La epibolia continuada las mantuvo estiradas mientras migraban sobre la membrana de sostén. Cuando se desacopló ese borde, aparecieron centros de contracción en una o dos horas, GDF1 alrededor de cuatro horas y media y una o dos líneas marcadas por SNAI2. Las cinco mitades sin epibolia formaron líneas, mientras que las ocho que la conservaron no lo hicieron; H1152 bloqueó la respuesta en cuatro mitades liberadas examinadas. La calyculin podía superar el estiramiento continuado.
La predicción fallida reveló una condición de contorno omitida. Luego, las mitades posteriores pusieron a prueba el reescalamiento: la readhesión a la membrana vitelina reconstruyó la tensión y restauró las proporciones, mientras que los bordes libres ampliaron la contracción. Los cortes continuados que mantenían la libertad acabaron produciendo una línea alargada a costa del territorio ectodérmico. El enfriamiento y la eliminación del exceso de medio favorecieron la adhesión; los cortes posteriores podían liberar el tejido.
Alrededor de las tres horas, los territorios GDF1/BRA eran más estrechos en las mitades adheridas y la asignación del ectodermo SOX3 difería, pero la expresión no se había reescalado por completo cuando ya lo había hecho la contracción instantánea. La deformación acumulada de los segmentos marginales seguidos predijo mejor GDF1. La deformación logarítmica,
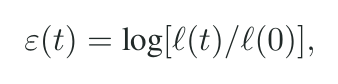
, distingue la tasa actual del acortamiento retenido. En condiciones normalizadas y equiparadas por etapa, la deformación y la expresión intermedias eran aproximadamente lineales, con saturación en regiones estiradas o contraídas de manera constante.
Los obstáculos de pelo o nailon pusieron a prueba si la respuesta se debía a la herida causada por el corte. La fricción frenó el tejido intacto y creó nuevos centros de contracción anteriores en 33 de 34 embriones, con GDF1 antes de las líneas ectópicas y de los territorios BRA/SOX3 redirigidos. Ski-1 volvió a separar la contracción de la respuesta ectópica del desarrollo. Los obstáculos a un solo lado impidieron un centro adicional en cinco de siete embriones; dos formaron uno. Un cambio del veinte por ciento en la propagación efectiva de la tensión reprodujo los resultados simulados alternativos.
La generación y transmisión de fuerza, el historial de deformación, la señalización molecular y la asignación de tejido forman una secuencia del desarrollo. La actividad presente de la codorniz conlleva una capacidad de formación ulterior bajo condiciones definidas, incluidas las condiciones de contorno reveladas por la predicción fallida. La fisiología explica las dependencias mantenidas; el desarrollo explica cómo su ejercicio transforma el todo. La historia evolutiva pregunta entonces cómo surgieron esas capacidades heredadas.
Integración e individualidad
La cooperación por sí sola no convierte algo en un nuevo individuo biológico. West y sus colegas destacan la división del trabajo, la comunicación, la dependencia y la reducción del conflicto dentro de un ciclo vital reproductivo integrado. Un cuello de botella unicelular alinea los intereses heredados de manera distinta a la agregación de células no emparentadas. En ambos casos, «alineación» se refiere a consecuencias reproductivas, no a un cálculo consciente.
La explicación de West limita el papel de la represión activa en varios orígenes que ya se caracterizan por la alineación, aunque reconoce excepciones como la vigilancia de las obreras. Bourke destaca el conflicto en la elaboración posterior de las transiciones: los orígenes clonales pueden presentar poco conflicto, pero las mutaciones somáticas posteriores y las colonias con reproducción sexual crean otras posibilidades. El origen y el desarrollo posterior requieren explicaciones separadas.
Un conflicto potencial puede no expresarse si no hay posibilidad de discriminar o actuar; un equilibrio compartido entre supervivencia y reproducción no tiene por qué ser un conflicto entre partes. Estas distinciones permiten investigar la unidad biológica mediante la herencia, la dependencia y las restricciones reales.
Organización destructiva y reparación
Los linajes cancerosos adquieren capacidades de proliferación sostenida, resistencia a la muerte, acceso vascular, evasión inmunitaria e invasión. La plasticidad y la reprogramación epigenética contribuyen junto con los cambios en las secuencias. Los fibroblastos, las células vasculares y las células inmunitarias reclutados pueden sostener un entorno local cuya persistencia perjudica al organismo huésped.
Así pues, la corrupción biológica incluye una actividad muy organizada que socava la integridad que la sustenta. La obstrucción, la invasión, la alteración de la arquitectura y el uso de recursos especifican el daño. En este sentido biológico, corrupción nombra una función destructiva, no una culpa moral.
La reparación de heridas comprende varios logros que pueden darse por separado. En los ajolotes, la eliminación temprana de macrófagos permitió cerrar las heridas epiteliales, pero impidió la regeneración de las extremidades y dejó muñones fibróticos. Cuando los macrófagos habían regresado, una nueva amputación más arriba en la extremidad podía reactivar el crecimiento. El cierre fue un logro local real, mientras que la extremidad ausente seguía siendo una pérdida. El resultado persistente también difería de la capacidad restante del animal bajo condiciones renovadas.
Por tanto, la regeneración, la compensación y el mantenimiento requieren descripciones diferenciadas. La regeneración reemplaza la organización perdida; la compensación permite la actividad mediante otras capacidades; el mantenimiento conserva una estructura existente a través del recambio. Su valor concierne a lo que permiten en la vida del sujeto receptor. La cantidad de tejido, una superficie cerrada o una apariencia estable no pueden demostrar por sí solas que se haya restaurado la actividad pertinente.
La resiliencia cambia por la interacción entre el mantenimiento del genoma, el control de calidad de las proteínas, las mitocondrias, las células madre, la comunicación, la inflamación y las relaciones microbianas. Los marcadores distintivos del envejecimiento organizan estos procesos interactivos en objetivos de intervención. La recuperación también puede fracasar por completo. Reutilizar los materiales de un organismo muerto no repara a ese organismo; la productividad del linaje o del ecosistema no puede ocultar su pérdida.
Los criterios aportados por la forma viviente
Una función causal contribuye a un proceso especificado; una función seleccionada explica la retención evolutiva; un objetivo regulador orienta el ajuste; un resultado del desarrollo se produce mediante la formación; un objetivo flexible permite medios variables y mantiene un resultado. Tanto el sonido de un corazón como su circulación son efectos, pero no explican por igual por qué se retienen los corazones. El alimento futuro de un animal no causa su movimiento presente hacia atrás en el tiempo; la organización actual hace posible que lo busque.
La historia de selección explica por qué un corazón dañado aún puede tener la circulación como función. La explicación histórica de Godfrey-Smith conserva esta distinción y reconoce a la vez las explicaciones basadas en el papel causal. Explicar por qué se retuvo una capacidad y cómo este organismo la ejerce o la recupera son tareas complementarias. Los experimentos con codornices muestran por qué hay que vincularlas al desarrollo: la tensión del tejido y su historia orientan la formación antes de que existan los órganos maduros. No hace falta imaginar un cuerpo maduro que actúe hacia atrás en el tiempo ni suponer que nombrar el cierre ya ha explicado toda transición. Tampoco el cambio del límite formal de un modelo establece cuándo comienza o deja de existir un sujeto vivo.
La distinción se extiende a los mecanismos de reparación. En las planarias, Durant y sus colegas alteraron brevemente la comunicación por uniones comunicantes y encontraron cambios persistentes en la regeneración posterior, incluso en gusanos cuya anatomía visible parecía normal. Lo y Petersen identificaron otra vía hacia una anatomía inusual: la inhibición de map3k1 permitió la diferenciación prematura de progenitores oculares migratorios, lo que produjo ojos ectópicos mientras los sitios originales de regeneración seguían disponibles. Por tanto, la forma visible no basta para determinar si cambió una disposición regenerativa conservada o se alteró su ejecución.
Un órgano funcional y un órgano capaz de recuperarse también pueden diferir. Hill y Petersen hallaron que los ojos fuera de un sitio de regeneración alterado podían seguir recibiendo células nuevas y permitir evitar la luz, pero no volver a crecer tras su extirpación. Durante el reescalamiento ordinario posterior a la amputación, los ojos existentes y los sitios donde se formarían los reemplazos también podían desplazarse temporalmente. Atabay y sus colegas vincularon de manera independiente los ojos ectópicos estables con el direccionamiento posicional y la incorporación celular. El mantenimiento, la función presente y la competencia regenerativa son capacidades separadas.
Las comparaciones identifican tres tareas explicativas distintas. El mantenimiento pregunta qué mantiene en funcionamiento una organización existente. El desarrollo pregunta cómo la actividad coordinada da forma a algo. La regeneración pregunta qué determina la reconstrucción después de una pérdida. Los experimentos con codornices ponen a prueba la formación mediante la mecánica del tejido; las intervenciones en planarias distinguen la disposición regenerativa conservada, su ejecución y la función presente. Por tanto, la recuperación satisfactoria de la forma requiere una prueba funcional aparte. Evitar la luz demuestra una actividad, y ni ese resultado ni la reconstrucción por sí solos establecen una representación interna de todo el cuerpo.
La reparación biológica se evalúa mediante las actividades y necesidades del organismo que continúa. Una forma inusual puede funcionar; una que parece normal puede ocultar un fallo de regeneración. El alimento, la coordinación, el movimiento y la reparación futura pueden favorecerse u obstruirse mutuamente, por lo que, al mejorar uno, hay que examinar los demás. El éxito local del cáncer y la productividad del ecosistema no pueden hacer desaparecer la pérdida del organismo lesionado. El capítulo 13 desarrolla las cuestiones adicionales de identidad y condición; aquí la organización viviente establece por qué la unidad pertinente del beneficio no es simplemente la parte más productiva ni el sistema más grande.
Estas explicaciones biológicas están al alcance tanto del naturalismo como de la explicación de la creación. Dentro de esta última, especifican los poderes mediante los cuales el don del Logos se convierte en actividad propia de un sujeto viviente receptor. Su origen y transformación histórica requieren la explicación evolutiva que sigue.
Investigación relacionada
Compara este capítulo con los documentos fuente o estudia sus referencias bíblicas.
Chapter comments