Makhluk hidup menjalankan sebagian pekerjaan yang memungkinkan kegiatannya berlanjut. Makhluk hidup membentuk batas, mengatur pertukaran, mengganti unsur-unsur penyusunnya, mengembangkan kapasitas, dan memperbaiki kerusakan. Kegiatan-kegiatan ini menopang kehidupan tertentu melalui materi yang berubah. Nutrisi dapat memperkuat kehidupan itu, luka dapat mengganggunya, dan perbaikan dapat memulihkan satu kegiatan sementara kehilangan lain tetap ada.
Kesinambungan di tengah pergantian
Membran secara selektif mengatur pergerakan melalui kanal, pembawa, dan pompa. Gradien kimiawi dan listrik yang dipertahankan mendukung transportasi dan produksi ATP; metabolisme menyediakan energi, sintesis, pemeliharaan, dan pembuangan. Mesin yang mempertahankan relasi-relasi ini dihasilkan dan diganti melalui relasi-relasi tersebut.
Montévil dan Mossio menguraikan ketergantungan timbal balik ini sebagai ketertutupan kendala (closure of constraints). Kendala menyalurkan suatu proses sambil mempertahankan struktur yang relevan selama rentang waktu proses itu: enzim mengatalisis reaksi tanpa terkonsumsi; pembuluh menyalurkan darah tanpa dibangun ulang pada setiap lintasan. Dalam jangka waktu yang lebih panjang, strukturnya perlu dipelihara. Dalam ketertutupan, kendala membantu menghasilkan atau memelihara satu sama lain melalui proses yang ditatanya. Pembuluh memasok sel-sel yang kegiatannya memelihara pembuluh tersebut. Ketertutupan dapat terjadi pada tingkat sel dan organisme; para pengarang secara eksplisit menyangkal bahwa ketertutupan saja mendefinisikan suatu organisme.
Otonomi seperti itu bergantung pada nutrisi, energi, dan lingkungan. Mossio, Montévil, dan Longo membedakan pemeliharaan susunan tertentu dari pemeliharaan organisasi melalui susunan yang berubah: kendala baru dapat mengubah kendala-kendala lain dan terintegrasi ke dalam keseluruhan yang layak hidup, atau justru menghancurkannya.
Suatu kumpulan materi dapat tetap konstan sementara isinya berubah. Model masukan--pengeluaran sederhana memperjelas perbedaan ini:
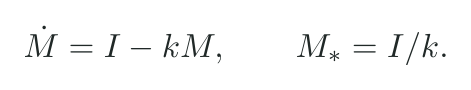
Jika masukannya tidak berlabel dan tidak ada daur ulang, materi yang semula berlabel mengikuti Q(t)=Q(0)e^(-kt). Karena itu, kumpulannya dapat tetap sebesar M_* sekalipun isi masing-masingnya berganti. Pergantian biologis juga membedakan molekul dari sel dan sangat bervariasi di antara jaringan. Sender dan Milo menemukan bahwa penggantian sel harian terutama terkonsentrasi dalam populasi darah dan usus, sehingga melemahkan anggapan universal tentang “penggantian tubuh” dalam jangka waktu tetap.
Kesinambungan organisasi menuntut hubungan yang berguna, bukan sekadar bentuk yang dipertahankan. Jaringan baru di lokasi yang salah dapat menghambat fungsi; tubuh yang tampak utuh dapat kehilangan daya tanggap. Otonomi adalah kegiatan terorganisasi yang berlangsung di tengah ketergantungan pada lingkungan. Dormansi juga termasuk dalam riwayat kehidupan, tanpa mengharuskan setiap kapasitas terus-menerus tampak.
Regulasi dan kapasitas yang diperoleh
Umpan balik negatif menentang penyimpangan, tetapi koreksi proporsional belum tentu menghilangkannya. Model sederhana adalah
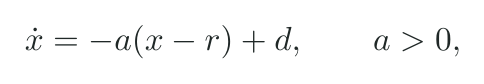
dan gangguan konstan menghasilkan x_*=r+d/a: koreksi proporsional menyisakan keadaan tunak yang bergeser alih-alih memulihkan r secara tepat. Efektor nyata menambahkan kejenuhan, keterlambatan, dan biaya. Sasaran yang berubah dan persiapan antisipatif mengoordinasikan tanggapan dengan kegiatan dan kebutuhan yang diperkirakan. Sterling mengembangkan gagasan ini dalam kerangka alostasis (allostasis), dan uraian homeostasis yang lebih luas mencakup fitur-fitur serupa.
Menghasilkan komponen dan mengoordinasikan penggunaannya merupakan pencapaian yang berbeda. Bich mengembangkan perbedaan ini menjadi uraian tentang keterarahan biologis: mekanisme regulasi memilih di antara kegiatan yang tersedia ketika kondisi berubah, dan mengarahkannya menuju kondisi yang memelihara sistem hidup. Hal ini menghubungkan kebutuhan organisme dengan cara organisme menyesuaikan kegiatannya.
Pengaturan waktu juga terorganisasi secara internal. Mutasi lalat buah yang diteliti Konopka dan Benzer menghasilkan keadaan tanpa ritme atau periode sekitar sembilan belas dan dua puluh delapan jam pada kemunculan dan gerak, yang diuji dalam kegelapan setelah siklus terang--gelap. Komponen internal yang berubah mengubah ritme, melampaui rangsangan eksternal langsung.
Paparan kekebalan mengubah tanggapan pada masa mendatang melalui populasi yang berkembang dan bertahan. Pematangan afinitas sel B memadukan mutasi dan seleksi; limfosit memori mempertahankan kapasitas respons tanpa ingatan sadar. Bentuk ingatan seluler lain bekerja melalui keadaan kromatin dan metilasi DNA yang menstabilkan ekspresi selama pembelahan sel.
Mitra juga dapat menyediakan kondisi kausal: memasukkan bakteri berfilamen tersegmentasi ke dalam tikus bebas kuman memicu sel Th17 usus. Intervensi yang terdefinisi ini menetapkan sumbangan mikroba terhadap respons internal. Kalibrasi hormonal, populasi kekebalan, keadaan kromatin, dan mitra mikroba dengan demikian mempertahankan riwayat yang berbeda. Urutan warisan yang serupa tidak harus menghasilkan kapasitas yang identik.
Urutan dan penafsirannya secara molekuler
Replikasi, transkripsi, dan translasi adalah proses fisik yang berbeda. Untuk mengisolasi pemetaan dari urutan pengode ke peptida, pertimbangkan wilayah artifisial ini dengan translasi eukariotik menggunakan kode standar dan konteks inisiasi yang diwajibkan:
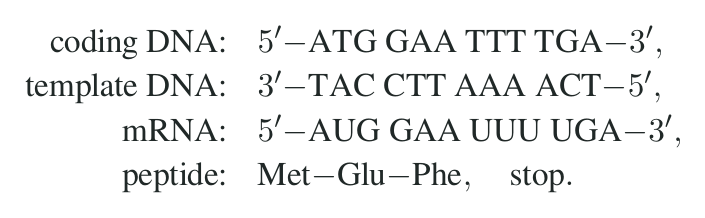
Kode standar menetapkan enam puluh satu dari enam puluh empat triplet untuk mengode asam amino dan tiga triplet sebagai kodon terminasi; tabel lain berbeda, termasuk UGA mitokondria sebagai triptofan. Kerangka pembacaan, konteks sekitarnya, dan substitusi tertentu menentukan dampak suatu perubahan.
Aminoasil-tRNA sintetase mengenali asam amino dan tRNA, menggunakan ATP untuk mengaktifkan asam amino lalu menautkannya pada tRNA sebagai muatan. Pengenalan antikodon dan pengisian muatan yang benar merupakan dua persyaratan terpisah. Ribosom mengatur RNA pembawa pesan, tRNA bermuatan, faktor pemanjangan, tahap yang digerakkan GTP, pembentukan peptida, dan faktor pelepas. RNA ribosom membentuk inti katalitik, sebagaimana ditunjukkan oleh struktur arkea yang diteliti Nissen dan rekan-rekannya.
RNA dapat berfungsi sebagai cetakan, adaptor, katalis, komponen struktural, regulator, atau urutan pewarisan pada virus. Transkripsi balik tidak membantah dogma sentral Crick, yang menyangkut arah transfer urutan secara terperinci, terutama tidak adanya translasi balik dari urutan protein menjadi asam nukleat.
Aktivitas protein selanjutnya bergantung pada pelipatan, pendamping molekuler, mitra, modifikasi, kofaktor, dan lokasi. Urutan persis suatu rantai saja tidak dapat menentukan perilaku subjek pembawanya; sel yang melakukan metabolisme dan berkembang menyediakan kondisi bagi penggunaannya.
Ketepatan melalui proses yang dapat keliru
Replikasi DNA memadukan seleksi awal, pemeriksaan ulang oleh eksonuklease, dan perbaikan ketidakcocokan. Jika tahap-tahapnya diperlakukan sebagai penyaring bersyarat, jalur skematisnya adalah
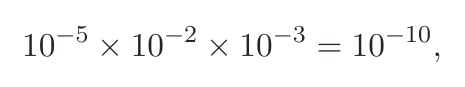
dalam rentang 10^(-9)--10^(-11) yang lebih luas dan dilaporkan per basa yang disalin pada setiap putaran. Faktor-faktor terakhir yang disebut merupakan peluang lolos bersyarat, sehingga ilustrasi tersebut tidak perlu mengandaikan bahwa semua jalur kesalahan saling bebas. Jenis kesalahan dan jalur kerusakan tetap perlu diperhitungkan secara terpisah.
Transkripsi memperbaiki kesalahan melalui seleksi, penelusuran balik, dan pemotongan, yang dibantu oleh faktor seperti TFIIS untuk polimerase II. Chung dan rekan-rekannya menggunakan salinan berulang dari fragmen RNA yang disirkularisasi untuk membedakan kesalahan RNA yang sudah ada dari banyak kesalahan pengurutan. Perkiraan substitusi polimerase II mereka kira-kira 2.9×10^(-6) pada ragi, 5.69×10^(-6) pada lalat, dan 4.7×10^(-6) pada fibroblas manusia primer yang tidak diberi perlakuan. Perubahan faktor fidelitas mengubah hasil pengukuran, yang menyangkut RNA seluler yang bertahan, bukan seleksi awal enzim yang diisolasi.
Seleksi dua saringan oleh sintetase menggunakan tempat aktivasi dan penyuntingan yang berbeda untuk membedakan asam amino serupa, seperti isoleusin dan valin yang lebih kecil. Penyuntingan sebelum atau setelah pemindahan melindungi relasi tRNA--muatan; pembacaan dekode yang benar oleh ribosom tidak dapat memperbaiki setiap kesalahan pengisian muatan yang lolos.
Pemeriksaan kinetik ribosomal memisahkan tahap-tahap seleksi sepanjang hidrolisis GTP. Stabilitas ikatan relatif dan laju reaksi menentukan penerimaan dan penolakan. Perkiraan umum kesalahan translasi yang mengubah asam amino, sekitar 10^(-3)--10^(-4) per kodon menyembunyikan variasi besar: pelapor lisin Kramer dan Farabaugh menghasilkan sekitar 3.6×10^(-3) untuk AGA dan 3.8×10^(-4) untuk AAC, setelah memperhitungkan aktivitas protein yang berubah.
Kesalahan replikasi, RNA, dan peptida memiliki penyebut, persistensi, dan amplifikasi yang berbeda. Dengan probabilitas kesalahan hipotetis yang seragam dan saling bebas sebesar e pada L posisi,
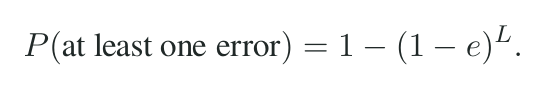
Untuk e=10^(-4),L=300, nilainya sekitar tiga persen, bukan probabilitas hilangnya fungsi atau kematian sel. Keandalan merupakan sifat sistem kerja berlapis yang digerakkan, termasuk dengan kesalahan yang tersisa.
Genom dan sumber daya rujukannya
Kelengkapan urutan, keterwakilan populasi, anotasi regulasi, dan penjelasan perkembangan menjawab pertanyaan yang berbeda. Rangkaian T2T-CHM13 tahun 2022 menyediakan sekitar 3.055 miliar pasangan basa dan autosom serta kromosom X tanpa celah, menambahkan hampir 200 juta basa dan 1.956 prediksi gen, sembilan puluh sembilan di antaranya pengode protein. Sumbernya yang berupa mola hidatidosa hampir homozigot membantu perakitan; sumber ini tidak memiliki kromosom Y.
Perakitan kromosom Y HG002 tahun 2023 menambahkan urutan sepanjang 62,460,029 basa, lebih dari 30 juta basa dibandingkan GRCh38-Y, dan empat puluh satu gen pengode protein tambahan, yang sebagian besar adalah TSPY. Bersama CHM13, rangkaian itu mencakup dua puluh empat jenis kromosom yang diambil dari sampel berbeda.
Draf pangenom 2023 menggunakan empat puluh tujuh perakitan diploid terfase, menambahkan 119 juta basa urutan polimorfik eukromatik dan 1.115 duplikasi relatif terhadap GRCh38. Jalur alternatif mengurangi keterbatasan satu rujukan tunggal tanpa mencakup seluruh keragaman manusia.
Sintesis ENCODE tahun 2020 menambahkan 5.992 himpunan data dan mendaftarkan 926.535 unsur cis-regulator kandidat manusia serta 339.815 unsur pada tikus, yang masing-masing mencakup 7,9 dan 3,4 persen. Tanda biokimia dan konteks yang dijadikan sampel mendefinisikan unsur-unsur kandidat ini; pengambilan sampel tikus yang lebih jarang memengaruhi cakupannya. Persentase ini bukan perkiraan jumlah total DNA fungsional. Aksesibilitas atau transkripsi menetapkan adanya aktivitas; perturbasi menetapkan sumbangan kausal; konservasi dan seleksi membahas retensi evolusioner. Sumber rujukan meningkatkan penyelidikan terhadap organisme, bukan menggantikannya.
Asal-usul sel kompleks memberi contoh berskala besar tentang integrasi, bukan sekadar tangga penambahan sederhana. Analisis filogenomik enzim metabolisme karbon sentral oleh Santana-Molina dan rekan-rekannya pada 2025 menemukan pola kimera pada leluhur bersama terakhir eukariotik: sumbangan arkea dan alfa-proteobakteri digabungkan dengan masukan prokariotik tambahan, lalu dibentuk ulang melalui kehilangan gen, transfer horizontal, dan pengarahan ulang subseluler selama lebih dari dua miliar tahun. Para pengarang menafsirkan sejarah ini, yang direkonstruksi dari genom organisme yang masih ada dan riwayat gen yang bergantung pada model, sebagai dukungan bagi model simbiotik dan sintrofik, ketika pertukaran metabolik menjadi pewarisan yang terorganisasi.
Mekanika dalam regulasi embrionik
Perkembangan menuntut uraian tentang organisasi yang berubah sekaligus organisasi yang dipertahankan. Kritik Cuciniello menerima penjelasan penutupan tentang pemeliharaan fisiologis diri, tetapi mempertanyakan bagaimana tujuan regulasi berasal dan berubah, serta apa yang membuat keseluruhan yang berkembang tetap merupakan organisme yang sama. Kebutuhan ulat pada saat ini tidak dengan sendirinya menjelaskan perubahannya menjadi ngengat.
Caldarelli dan rekan-rekannya meneliti epiblas puyuh pada tahap awal. Bagian posteriornya berkontraksi sementara wilayah marginal anteriornya meregang, tetapi wilayah-wilayah tersebut mempertahankan proporsi yang kira-kira stabil saat sel bergerak ke posterior menuju garis primitif. Model mereka menggabungkan kontraksi aktomiosin yang diperkuat secara lokal dengan inhibisi jarak jauh melalui tegangan yang ditransmisikan, hambatan dari sekelilingnya, dan bias posterior awal.
Intervensi kemudian memisahkan pergerakan dari konsekuensi perkembangannya. Pengurangan kontraktilitas dengan H1152 menekan GDF1 marginal dan brachyury (BRA), sedangkan peningkatannya dengan calyculin A memperluas ekspresi. Penghambatan sinyal mekanosensitif terkait SRC oleh Ski-1 mempertahankan aliran jaringan tetapi mengganggu ekspresi, sehingga memisahkan gerak mekanis dari kaitannya dengan perkembangan melalui jalur β-catenin yang diusulkan.
Separuh anterior yang diisolasi dengan laser pada awalnya gagal membentuk garis primitif baru yang diprediksi. Epiboli yang berlanjut membuatnya terus meregang saat bermigrasi melewati membran penyangga. Ketika tepi itu dilepaskan, pusat kontraksi muncul dalam satu hingga dua jam, GDF1 sekitar empat setengah jam kemudian, dan satu atau dua garis primitif bertanda SNAI2. Kelima bagian yang tanpa epiboli semuanya membentuk garis primitif, sedangkan kedelapan bagian yang mempertahankan epiboli tidak; H1152 menghambat respons dalam empat bagian yang dilepaskan dan diuji. Calyculin dapat mengatasi peregangan yang berlanjut.
Prediksi yang gagal itu menunjukkan adanya kondisi batas yang terlewatkan. Bagian posterior kemudian menguji penskalaan ulang: pemasangan kembali pada membran vitelin membangun ulang tegangan dan memulihkan proporsi, sedangkan tepi bebas memperluas kontraksi. Pemotongan lanjutan yang mempertahankan kebebasan akhirnya menghasilkan garis primitif memanjang dengan mengorbankan wilayah ektoderm. Pendinginan dan penghilangan medium berlebih membantu pemasangan; pemotongan berikutnya dapat melepaskannya.
Sekitar tiga jam kemudian, wilayah GDF1/BRA lebih sempit pada bagian yang terpasang dan alokasi ektoderm SOX3 berbeda, tetapi ekspresi belum diskalakan ulang sepenuhnya ketika kontraksi sesaat sudah demikian. Deformasi terakumulasi pada segmen marginal yang dilacak lebih baik memprediksi GDF1. Regangan logaritmik,
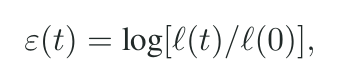
membedakan laju saat ini dari pemendekan yang dipertahankan. Pada kondisi yang dinormalisasi dan disepadankan menurut tahap, deformasi menengah dan ekspresi kira-kira linear, dengan kejenuhan di wilayah yang secara konsisten diregangkan atau dikontraksikan.
Hambatan berupa rambut atau nilon menguji apakah respons luka akibat pemotongan menjelaskan hasil tersebut. Gesekan memperlambat jaringan utuh dan menciptakan pusat kontraksi anterior baru pada tiga puluh tiga dari tiga puluh empat embrio, dengan GDF1 yang mendahului garis primitif ektopik serta wilayah BRA/SOX3 yang dialihkan. Ski-1 kembali memisahkan kontraksi dari respons perkembangan ektopik. Hambatan pada satu sisi mencegah pusat tambahan pada lima dari tujuh embrio; dua membentuk satu pusat. Perubahan dua puluh persen pada perambatan tegangan efektif menghasilkan kembali hasil simulasi alternatif.
Pembangkitan gaya, transmisi, riwayat deformasi, sinyal molekuler, dan alokasi jaringan membentuk satu rangkaian perkembangan. Kegiatan puyuh saat ini membawa kapasitas bagi pembentukan lebih lanjut dalam kondisi yang pasti, termasuk kondisi batas yang diungkapkan oleh prediksi yang gagal. Fisiologi menjelaskan ketergantungan yang dipertahankan; perkembangan menjelaskan bagaimana pelaksanaannya mengubah keseluruhan. Sejarah evolusioner kemudian menanyakan bagaimana kapasitas-kapasitas yang diwariskan itu muncul.
Integrasi dan individualitas
Kerja sama saja tidak menghasilkan individu biologis yang baru. West dan rekan-rekannya menekankan pembagian kerja, komunikasi, ketergantungan, dan berkurangnya konflik dalam siklus reproduksi yang terintegrasi. Tahap penyempitan melalui satu sel menyelaraskan kepentingan warisan secara berbeda dari penggabungan sel-sel yang tidak berkerabat. Dalam kedua kasus, “penyelarasan” menyangkut konsekuensi reproduktif, bukan perhitungan sadar.
Uraian West membatasi peran penekanan aktif dalam beberapa asal-usul yang sudah dicirikan oleh penyelarasan, sambil mengakui pengecualian seperti pengawasan pekerja. Bourke menekankan konflik dalam elaborasi selanjutnya pada berbagai transisi: asal-usul klonal mungkin hanya menimbulkan sedikit konflik, tetapi mutasi somatik kemudian dan koloni yang bereproduksi secara seksual menciptakan kemungkinan yang berbeda. Asal-usul dan perkembangan selanjutnya memerlukan penjelasan tersendiri.
Potensi konflik dapat tetap tak terungkap ketika pembedaan atau tindakan tidak tersedia; pertukaran antara kelangsungan hidup dan reproduksi yang dialami bersama tidak harus berarti konflik di antara bagian-bagian. Pembedaan-pembedaan ini memungkinkan kesatuan biologis diselidiki melalui pewarisan, ketergantungan, dan kendala yang nyata.
Organisasi yang merusak dan perbaikan
Garis keturunan kanker memperoleh kapasitas untuk proliferasi berkelanjutan, melawan kematian, memperoleh akses vaskular, menghindari kekebalan, dan menginvasi. Plastisitas dan pemrograman ulang epigenetik turut berperan bersama perubahan urutan. Fibroblas, sel vaskular, dan sel kekebalan yang direkrut dapat mendukung lingkungan setempat yang keberlangsungannya merusak inang.
Dengan demikian, kerusakan biologis mencakup kegiatan yang sangat terorganisasi tetapi merusak integritas yang menopangnya. Penghambatan, invasi, perubahan arsitektur, dan penggunaan sumber daya membuat kerugiannya spesifik. Dalam pengertian biologis ini, kerusakan menunjuk pada fungsi yang merusak, bukan kesalahan moral.
Perbaikan luka mencakup beberapa pencapaian yang dapat terpisah. Pada aksolotl, pengurangan makrofag sejak awal memungkinkan penutupan luka epitel, tetapi mencegah regenerasi tungkai sehingga meninggalkan tunggul fibrotik. Setelah makrofag kembali, amputasi baru yang lebih tinggi pada tungkai dapat mengaktifkan kembali pertumbuhan. Penutupan itu merupakan pencapaian setempat yang nyata, sementara tungkai yang hilang tetap merupakan kehilangan. Hasil yang menetap itu juga berbeda dari kapasitas tersisa pada hewan tersebut dalam kondisi yang diperbarui.
Karena itu, regenerasi, kompensasi, dan pemeliharaan memerlukan uraian yang berbeda. Regenerasi mengganti organisasi yang hilang; kompensasi memungkinkan kegiatan melalui kapasitas lain; pemeliharaan mempertahankan struktur yang ada melalui pergantian. Nilainya menyangkut hal-hal yang dimungkinkannya dalam kehidupan penerima. Jumlah jaringan, permukaan yang tertutup, atau tampilan yang stabil tidak dengan sendirinya menetapkan bahwa kegiatan yang relevan telah dipulihkan.
Ketahanan berubah melalui interaksi antara pemeliharaan genom, kendali mutu protein, mitokondria, sel punca, komunikasi, peradangan, dan relasi mikroba. Ciri-ciri penuaan mengelompokkan proses-proses yang saling berinteraksi ini menjadi sasaran intervensi. Pemulihan juga dapat gagal sepenuhnya. Penggunaan kembali materi organisme yang mati bukanlah perbaikan terhadap organisme itu; produktivitas garis keturunan atau ekosistem tidak dapat menyamarkan kehilangannya.
Standar yang disediakan bentuk kehidupan
Peran kausal menyumbang pada proses tertentu; fungsi terseleksi menjelaskan retensi evolusioner; sasaran regulasi memandu penyesuaian; titik akhir perkembangan merupakan hasil pembentukan; tujuan yang lentur memungkinkan sarana yang bervariasi sambil mempertahankan hasil. Bunyi jantung dan sirkulasinya sama-sama merupakan akibat, tetapi keduanya tidak sama baiknya dalam menjelaskan mengapa jantung dipertahankan. Makanan yang akan dibutuhkan hewan kelak tidak menyebabkan gerakannya sekarang dengan bekerja mundur dalam waktu; organisasi saat ini memungkinkan pengejaran makanan.
Sejarah seleksi menjelaskan mengapa jantung yang terganggu masih dapat memiliki sirkulasi sebagai fungsinya. Uraian historis Godfrey-Smith mempertahankan pembedaan ini sambil mengakui penjelasan berdasarkan peran kausal di sampingnya. Menjelaskan mengapa suatu kapasitas dipertahankan dan bagaimana organisme ini menjalankannya atau memulihkannya merupakan tugas-tugas yang saling melengkapi. Eksperimen puyuh menunjukkan mengapa perkembangan harus menggabungkan keduanya: tegangan jaringan dan sejarahnya mengarahkan pembentukan sebelum organ matang ada. Kita tidak perlu membayangkan tubuh matang bertindak mundur dalam waktu atau menganggap penyebutan ketertutupan sudah menjelaskan setiap transisi. Perubahan batas formal suatu model juga tidak menetapkan kapan suatu subjek hidup mulai atau berhenti ada.
Pembedaan ini juga berlaku pada mekanisme perbaikan. Pada planaria, Durant dan rekan-rekannya mengganggu komunikasi melalui sambungan celah untuk waktu singkat dan menemukan perubahan menetap pada regenerasi berikutnya, termasuk pada cacing yang anatominya tampak biasa. Lo dan Petersen mengenali jalur lain menuju anatomi yang tak biasa: penghambatan map3k1 memungkinkan progenitor mata yang bermigrasi berdiferensiasi terlalu dini, sehingga menghasilkan mata ektopik sementara lokasi regenerasi semula tetap tersedia. Karena itu, bentuk yang tampak tidak cukup untuk menentukan apakah disposisi regeneratif yang dipertahankan telah berubah atau pelaksanaannya terganggu.
Organ yang berfungsi dan organ yang dapat pulih juga mungkin berbeda. Hill dan Petersen menemukan bahwa mata di luar lokasi regenerasi yang berubah dapat terus menerima sel baru dan mendukung penghindaran cahaya, namun gagal tumbuh kembali setelah diangkat. Dalam penskalaan ulang biasa setelah amputasi, mata yang ada dan lokasi terbentuknya penggantinya juga dapat bergeser sementara. Atabay dan rekan-rekannya secara terpisah menghubungkan mata ektopik yang stabil dengan penentuan posisi sasaran dan penggabungan sel. Pemeliharaan, fungsi saat ini, dan kompetensi regeneratif adalah kapasitas yang terpisah.
Perbandingan tersebut menunjukkan tiga tugas penjelasan yang berbeda. Pemeliharaan menanyakan apa yang membuat organisasi yang ada tetap berfungsi. Perkembangan menanyakan bagaimana kegiatan yang terkoordinasi mewujudkan suatu bentuk. Regenerasi menanyakan apa yang menentukan rekonstruksi setelah kehilangan. Eksperimen puyuh menguji pembentukan melalui mekanika jaringan; intervensi planaria membedakan disposisi regeneratif yang dipertahankan, pelaksanaan, dan fungsi saat ini. Karena itu, pemulihan bentuk yang berhasil membutuhkan uji fungsi tersendiri. Penghindaran cahaya menetapkan satu kegiatan, dan baik hasil itu maupun pembangunan kembali saja tidak menetapkan adanya representasi internal atas keseluruhan tubuh.
Perbaikan biologis dinilai melalui kegiatan dan kebutuhan organisme yang terus hidup. Bentuk yang tidak biasa dapat berfungsi; bentuk yang tampak normal dapat menyembunyikan kegagalan regenerasi. Nutrisi, koordinasi, gerak, dan perbaikan mendatang dapat saling mendukung atau menghambat, sehingga perbaikan pada satu hal menuntut pemeriksaan atas yang lain. Keberhasilan setempat kanker dan produktivitas ekosistem tidak dapat menghapus kehilangan organisme yang terluka. Bab 13 mengembangkan pertanyaan lebih lanjut tentang identitas dan kedudukan; di sini organisasi hidup menjelaskan mengapa satuan manfaat yang relevan bukan hanya bagian paling produktif atau sistem terbesar.
Penjelasan biologis ini tersedia baik bagi naturalisme maupun bagi uraian penciptaan. Dalam kerangka yang kedua, penjelasan ini menetapkan daya yang melaluinya anugerah Logos menjadi kegiatan milik penerima hidup. Asal-usul dan perubahan historisnya memerlukan uraian evolusioner yang menyusul.
Riset terkait
Bandingkan bab ini dengan dokumen sumber atau pelajari rujukan Alkitabnya.
Chapter comments